

JADE 1
JADE1| JADE 1 | |||||||||||||||||||||||||
|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|---|
| 식별자 | |||||||||||||||||||||||||
| 에일리어스 | JADE1, PHF17, 제이드 패밀리 PHD 핑거 1 | ||||||||||||||||||||||||
| 외부 ID | OMIM: 610514 MGI: 1925835 HomoloGene: 18162 GeneCard: JADE1 | ||||||||||||||||||||||||
| |||||||||||||||||||||||||
| |||||||||||||||||||||||||
| |||||||||||||||||||||||||
| |||||||||||||||||||||||||
| 맞춤법 | |||||||||||||||||||||||||
| 종. | 인간 | 마우스 | |||||||||||||||||||||||
| 엔트레즈 | |||||||||||||||||||||||||
| 앙상블 | |||||||||||||||||||||||||
| 유니프로트 | |||||||||||||||||||||||||
| RefSeq(mRNA) |
| ||||||||||||||||||||||||
| RefSeq(단백질) |
| ||||||||||||||||||||||||
| 장소(UCSC) | Chr 4: 128.81 ~128.88 Mb | Chr 3: 41.51 ~41.57 Mb | |||||||||||||||||||||||
| PubMed 검색 | [3] | [4] | |||||||||||||||||||||||
| 위키데이터 | |||||||||||||||||||||||||
| |||||||||||||||||||||||||


JADE1은 JADE1 [5][6][7][8]유전자에 의해 인간에게 암호화되는 단백질이다.
가족
아포토시스 및 분화를 위한 유전자(JADE)[6]라는 이름의 작은 단백질 패밀리는 개별 유전자에 의해 코드된 세 개의 구성원을 포함합니다: 식물 호메오 도메인-17, JADE1, PHF16, PHF15.모든 JADE 패밀리 단백질은 2개의 주목할 만한 중간 분자 도메인을 가지고 있다: 표준 식물 호메오 도메인(PHD) 아연 핑거와 확장된 PHD 유사 아연 핑거.따라서 JADE1은 PHD 단백질군의 일원으로 분류된다.PHF17 유전자의 두 가지 알려진 단백질 산물이 있는데, 전장 JADE1L과 그 스플라이스 변이체이며, 짧은 등소형이라고도 불리는 C 말단 단편이 누락되어 있다.
검출
나가세 외는 [9]PHF17로 명명된 클론 KIAA1807을 포함하여 태아 뇌 cDNA 라이브러리에서 100개의 개별 cDNA를 복제하고 염기서열을 분석했습니다.이 클론의 예측된 702-아미노산 단백질 생성물은 인간 아연 핑거 단백질 BR140(BRPF1)[10]과 유사했다.염기서열 데이터베이스 분석을 바탕으로 연구는 PHF17이 핵산 관리 [9]경로에서 기능할 수 있음을 시사했다.효모 두 가지 하이브리드 풀다운 방식을 사용하여 Von Hippel Lindau 유전자(pVHL)의 단백질 제품의 새로운 파트너를 찾아낸 또 다른 연구에서는 KIAA1807 [11]복제와 일치하는 cDNA가 확인되었습니다.해당 cDNA의 단백질 제품 이름은 JADE1(Jade-1, PHF17)[11]이었다.JADE1 cDNA의 추출된 509 아미노산 길이 단백질 제품은 [11]pVHL의 물리적 파트너로 추가로 확인되었다.배아 형성과 관련된 유전자를 탐색하는 유전자 선별 연구에서 JADE1의 마우스 오솔로그가 확인되었다.[6]이 연구는 JADE1 유전자의 첫 번째 특징을 제시하고 새로운 JADE 패밀리를 정의했다.그 연구는 JADE1 유전자를 복제한 쥐를 낳았다.
사람과 생쥐의 Jade1 성분은 대체 스플라이싱과 폴리아데닐화를 거치며, 두 가지 주요 성분은 전장 6kb mRNA와 3.6kb mRNA이다.[6]JADE1 유전자의 단백질 생성물 2개를 짧은 것은 JADE1S, 긴 것은 JADE1L로 명명하였다.몇 개의 마이너 트랜스크립트도 검출됩니다.데이터베이스 분석 결과 2개의 추가 JADE1 패밀리와 JADE 패밀리 멤버인 JADE2 및 JADE3가 발견되었습니다.JADE3는 유방암 [12]세포에서 PHF16/JADE3/E9의 아포토시스 역할을 제안한 이전의 독립적인 연구에서 확인된 E9 단백질과 동일하다.
JADE1은 4번 염색체(4q26-q27)에 매핑되었습니다.JADE1은 보존되어 있으며 그 철자법은 대부분의 메타조아에서 발견되거나 예측되고 있다.유전자 구조와 배열, 변종, 보존, 정형 및 병변, JADE1 계통수 및 JADE1 조직발현의 대규모 스크리닝은 여러 광범위한 데이터베이스(https://www.genecards.org; http://useast.ensembl.org)에서 찾을 수 있다.
구조.
풀렝스 JADE1 폴리펩타이드에는 표준 도메인 1개와 확장 PHD 아연 핑거 [13]도메인이 1개 있습니다.다른 도메인에는 N-말단 후보 PEST 도메인, 폴리콤 유사 도메인의 Enhancer 및 C-말단 핵 위치 결정(NLS) 신호[6][11](prosite.expasy.org)가 포함됩니다.JADE1 단백질은 인산화를 포함한 번역 후 수정의 대상이다(그림 1).
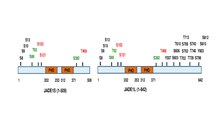
6개의 아미노산 잔기는 Aurora A 키나제 [14][15]경로를 통해 세포주기 의존적인 방식으로 인산화되는 것으로 확인되었다.JADE1은 카제인산화효소2(CK2)[16]에 의한 인산화 목표물이다.또한 높은 스루풋 스크리닝 접근법과 실리코 분석에 의해 여러 인산화 부위가 발견됩니다.참조가 있는 JADE1L 및 JADE1S 단백질 인산화 부위의 요약 도식은 [15]에서 찾을 수 있다.
표준 PHD 핑거와 확장된 PHD 핑거로 이루어진 단백질은 대형 PHD 단백질 패밀리(www.genenames.org) 내에서 작은 서브패밀리를 형성한다.PHD 핑거의 탠덤을 가지며 JAD1과 관련된 다른 단백질에는 크로마틴 결합 및 수식 복합체 BRPF1, BRPF3, BRD1의 [17]구성 요소인 단백질이 포함된다.JADE1 PHD 도메인의 결정 구조는 아직 해결되지 않았습니다.Canical PHD 핑거 모티브에는 시그니처 C4가 있습니다.HC3는 비교적 작고 안정적인 구조를 나타내며 C3와는 다르다.HC4 타입의 RING 핑거.PHD 도메인은 히스톤 H3의 특정 메틸화 리신을 인식하고 결합할 수 있으며, 히스톤 H3 도메인은 후생 히스톤 코드 [18][19][20]판독기로 정의한다.PHD 핑거의 구조와 특성을 상세하게 설명하는 [21][22][23][24]리뷰를 이용할 수 있습니다.
셀룰러 기능
JADE1 단백질은 다기능성 단백질로 여러 단백질 파트너와 상호작용합니다.
히스톤 아세틸화
두 번째 확장된 PHD 아연 핑거를 필요로 하는 히스톤 아세틸화 및 전사 활성화에 있어 JADE1의 기능은 2004년(16)에 보고되었다. JAD1은 MIST 패밀리 HAT TIP60 및 HBO1의 특이성인 히스톤 H3가 아닌 크로마틴 내 아세틸화 히스톤 H4의 수준을 극적으로 증가시켰다.TIP60은 물리적으로 JADE1과 관련지어 라이브 셀에서 JADE1 HAT 기능을 강화합니다.TIP60과 JADE1은 서로 안정화되었습니다.JADE1의 전사 및 HAT 활동에는 PHD2가 필요합니다.결과에 따르면 JADE1 PHD2의 [25]크로마틴 타겟팅 역할이 나타납니다.또한 JADE1의 PHD2는 메틸화 [26]상태에 관계없이 히스톤H3의 N말단 꼬리를 크로마틴 컨텍스트 내에서 결합시킨다.
단백질의 IN히비터(INHibitor of Growth) PHD 핑거 패밀리의 토종 복합체를 분석한 연구에서 ING4 및 ING5 단백질이 JADE1S 및 HAT [27]HBO1과 관련이 있는 반면, ING3는 EPC1(JADE1 호몰로그), TIP60(HBO1 호몰로그) 및 여러 다른 파트너와 관련이 있는 것으로 밝혀졌다.두 복합체 모두 작은 Eaf6 단백질을 포함하고 있었다.HBO1과 TIP60에 의해 형성된 복합체의 생화학 및 실리코 내 분석은 공통 아키텍처를 제안했고 벌크 히스톤 H4 아세틸화에서 JADE1의 역할을 뒷받침했다.JADE1과 HBO1의 기능적 상호작용의 특성은 복합체 간의 구조적, 기능적 유사성을 보여준다(16, 19).TIP60과 마찬가지로 JADE1과 HBO1은 서로 [28]안정적입니다.JADE1은 HBO1과 결합되어 HBO1이 글로벌히스톤 H4 아세틸화를 강화할 수 있도록 합니다.이것은 온전한 PHD2 [28]핑거를 필요로 합니다.HBO1과 마찬가지로 JADE1은 배양된 세포에서 벌크히스톤 H4 아세틸화를 담당한다.H4K5, H4K12 및 가장 가능성이 높은 H4K8은 배양 세포 및 생체 [14][26][29]내에서의 JADE1 의존성 아세틸화의 대상이다.선별 접근법을 사용한 실험에서 [26][30]JADE1의 몇 가지 잠재적 전사 목표가 제안되었다.ChIP-chip assay에 의한 유전자 분석의 스크리닝에 의하면, JADE1L 복합체는 많은 유전자의 부호화 영역을 중심으로 발견되며, JADE1L의 풍부성은 H3K36me3 히스톤 마크와 주로 상관관계가 있다.JADE1L 과발현은 많은 [26]유전자의 코딩 영역에서 H4acK8의 증가량과 상관관계가 있다.JADE1의 두 개의 PHD 아연 핑거는 히스톤의 [26][30][31]비메틸화 N 말단 펩타이드를 우선적으로 결합하는 것으로 보인다.JADE1 isoforms는 JADE1L-HBO1-ING4/5와 JADE1S-HBO1 [28]복합체라는 적어도 2개의 다른 복합체를 조합합니다.C 터미널 프래그먼트가 없기 때문에 JADE1S는 ING4/5 [28]파트너를 바인딩할 수 없습니다.덜 특징적인 단백질 [30]Eaf6도 JADE1 복합체의 또 다른 성분이다.
셀 사이클
벌크 히스톤 H4의 N 말단 단편의 아세틸화는 DNA 합성 및 세포 [32][33][34][35][36]분열과 관련이 있는 것으로 알려져 있다.몇몇 연구는 [25][29]HBO1 경로에 연결된 JADE1의 세포 주기 역할을 지원한다.배양세포에서 [25][27][28][29]벌크히스톤 H4의 아세틸화에 JADE1과 HBO1이 독립적으로 필요하다.JADE1 단백질의 히스톤 H4대부분 아세틸화 1)감소 수준, DNA합성의 교양 있는 세포에서 2) 느린 속도로;의 합계와 chromatin-bound HBO1의[29]3)감소 수준,[28][29]4)MCM7.[29]의 염색질 채용 이런 결과에 동의하는 것의 폐기, JADE1L over-expression 염색질 증가에siRNA 결과에 의한 감소이다-bound MCM3 proDNA 복제 이벤트에 [37]대한 JADE1 고갈의 영향은 원래 HBO1에 대해[38] 설명된 것과 유사하며 HBO1 매개 세포 주기 조절에서 JADE1에 대한 어댑터 역할을 제안한다.
JADE1의 DNA 손상에서의 역할이 제안되었다.최근에 발견된 비부호화 RNA lncRNA-JADE는 JADE1 발현을 조절하고 DNA 손상 응답(DDR)과 벌크 히스톤 H4 아세틸화 [39]사이의 기능적 링크를 제공한다.결과는 히스톤 H4 아세틸화와 [39]연결된 DNA 합성의 역할을 지원한다.배양된 세포에서 lncRNA-JADE는 DNA 손상 약물에 대한 세포 민감도를 증가시켰다.마우스 종양 이종 이식 모델에서 lncRNA-JADE의 녹다운은 이종 이식 유방 종양 성장을 억제했다.인간 실험 연구에서 유방암 조직에서는 정상 조직보다 높은 수준의 lncRNA-JADE와 JADE1 단백질이 검출되었다.마지막으로, 높은 JADE1 단백질 수치는 유방암 환자의 생존율과 반비례한다.연구는 lncRNA-JADE가 유방 종양 발생에 기여할 수 있으며 JADE1 단백질이 이 효과의 [39]적어도 일부를 매개한다고 시사한다.JADE1과 사이토키네시스.JADE1S는 [14][15]작은 아이소폼 특유의 기능인 상피세포 사이클의 사이토키네시스를 부정적으로 조절한다.G2/M/G1 전이에서 JADE1 기능을 제안한 첫 번째 보고서는 G2 후기 단계에서 JADE1S가 염색질에서 세포질로의 해리와 연계된 인산화를 겪는 것을 보여주었다.질량 스펙트럼 분석은 총 6개의 개별 아미노산 잔기가 유사분열 키나제에 [14]의해 인산화된다는 것을 확인했다.약리학적 분석에 근거하여 JADE1 인산화 및 구획화는 Aurora A [14][15]및 Aurora B 경로에 의해 조절된다.다른 키나아제들도 보고되었으며,[16][40] 한 가지 역할을 할 수 있다.말단 주위의 유사분열 완료 후, JADE1S 단백질의 주요 풀은 탈인산화 과정을 거치고, 개질된 [14]핵 내부의 명백한 응축 크로마틴과 재결합한다.JADE1S의 개별 풀은 분할 도랑과 관련지어지고 이어서 사이토키네틱 [15]브리지의 중간체에 나타납니다.사이토키네시스를 받고 있는 세포의 중간체에서는 JADE1S만 발견되었고, JADE1L이나 HBO1은 발견되지 않았다.세포 분열 중 JADE1S의 공간 조절은 세포 분열과 최종 [15][41]절단을 포함하는 G2/M에서 G1로의 전환에서 역할을 제안했다.사이토키네시스(Cytokinesis)는 세포질, 막, 염색질을 포함한 세포성분의 충실도를 조절하는 세포주기의 마지막 단계이다.사이토키네틱 브릿지는 중간체 부근에서 발생하는 최종 절단 과정에서 절단되며 최대 2시간이 소요될 수 있습니다.사이토키네시스 및 최종 절제술은 조절 단백질 복합체와 체크포인트 단백질에 의해 엄격하게 제어된다.지난 10년간 사이토키네시스 제어에 관한 보고가 증가하고 있다.[42][43][44][45][46]
사이토키네시스에서의 JADE1의 역할은 여러 기능적 분석과 세포 배양 [15]모델을 사용함으로써 입증되었다.FACS에 의한 DNA 프로파일링은 JADE1S 고갈이 Hela 세포를 동시에 분할할 때 G1 세포 축적 속도를 촉진했음을 보여주었다.비동기적으로 분열하는 세포에서 JADE1S 단백질이 고갈되면서 세포비중이 감소했고, 다핵세포비중이 증가했다.데이터는 JADE1이 사이토키네시스 지연에 기여함으로써 사이토키네시스를 부정적으로 제어한다는 것을 보여주었다.JADE1 다운 레귤레이터는 사이토키네시스 장애를 나타내는 다핵세포의 수를 증가시켰으며, JADE1S의 적당한 과발현은 사이토키네시스 지연을 나타내는 사이토키네틱 세포의 수를 증가시켰다.특정 소분자 약물에 의한 Aurora B 키나제 억제는 JADE1S 매개 세포유발 지연을 초래하고 절제 진행을 허용했다.Aurora B는 NoCut의 주요 조절 장치이기 때문에 JADE1S는 절단 검사점 [15][41]제어 시 사이토키네시스를 조절할 가능성이 높습니다.JADE1S가 아닌 JADE1L이나 HBO1이 세포주기 전반에 걸쳐 분열세포의 중심체에서 발견되었으며, 이러한 단백질은 섬모에서 발견되지 않았다.이와는 대조적으로, 다른 연구에서는 섬모 [40]및 중심체에 JADE1의 국소화를 보고했습니다.이 연구는 JADE1 아이소폼의 [40]특이성에 대해 전달하지 않았다.중심체는 세포골격 핵의 중심이다.중심체 시그널링은 세포 형태, 운동성, 방향, 극성, 분열 평면의 정의와 유사분열 [47][48]및 사이토키네시스 동안 자매 염색체 분리의 충실도에 기여합니다.
pVHL
JADE1S의 첫 번째 단백질 파트너는 2002년 종양 [11]억제제인 pVHL의 새로운 파트너를 찾는 연구에서 확인되었다.JADE1-pVHL의 [49][50][51]기능적 상호작용에 대한 몇 가지 후속 연구는 결합을 특징짓고 통찰력을 제공했다.인간의 pVHL은 폰 히펠-린다우 유전병과 산발적인 투명 세포 [52][53][54][55][56]신장암의 대부분에서 돌연변이된다.pVHL의 특성과 기능은 수십 년 동안 조사되어 왔으며 광범위한 문헌을 이용할 수 있다.pVHL의 가장 잘 알려진 기능 중 하나는 단백질 유비퀴티네이션과 프로테오솜 분해를 매개하는 것이다.유비퀴틴 연결효소 E3 복합체 pVHL은 유비퀴티화를 위해 [55]HIF1a 및 HIF2a를 포함한 여러 알려진 인자를 결합하고 표적화한다.저산소증에 의한 HIF1a 활성화 메커니즘과 이 경로에서 pVHL의 역할은 10년 [57]이상 전에 보고되었다.VHL 단백질은 집중적으로 연구되어 자연발생 돌연변이와 암과의 연관성이 확인되었다.다른 원인 HIF-1a 독립 pVHL 경로가 [58]고려되었다.pVHL-JADE1S의 물리적 상호작용은 효모-2 하이브리드 스크리닝 분석에 의해 확인되었으며 생화학적으로 추가로 확인되었다.pVHL의 공동 감염은 JADE1S 단백질의 반감기와 풍부함을 증가시켜 잠재적인 긍정적인 [11]관계를 시사했다.포인트 돌연변이가 아닌 특정 pVHL 암 유래의 절단은 pVHL-JADE1 안정화 기능을 감소시켜 pVHL 관련 [51]암과의 연관성을 시사했다.JADE1-pVHL 상호작용의 분자 경로와 세포적 중요성은 잘 알려져 있지 않다.JADE1S 고유의 유비퀴틴 리가제 활성과 베타-카테닌의 유비퀴티화를 설명하는 단일 연구는 [49]2008년에 보고되었다.이 연구를 바탕으로 pVHL이 JADE1을 통해 베타-카테닌을 조절하는 모델이 제안되었으며, 이 활동을 위해 PHD 아연 핑거가 필요합니다.
아포토시스
아포토시스에서 JADE1S 기능이 제안되었지만 메커니즘은 여전히 명확하지 않고 결과를 [11][30][49][50][51]조화시키기 어렵다.연구에 따르면 JADE1 과잉발현은 세포 성장 속도를 늦추고 세포 주기 정지 단백질 p21을 유도한다.JADE1S 단백질을 안정적으로 발현하는 신뢰할 수 있는 세포주를 확립하려는 몇 가지 시도가 성공하지 못했는데, 아마도 음성 세포 자체 선택 때문일 것이다.그와 반대로, 다른 연구는 JADE1의 하향 조절이 동시에 분열하는 [28][39]세포에서 DNA 합성 속도를 감소시켰다는 것을 보여준다.배양세포의 간접면역형광 및 현미경 분석에 따르면 배양세포에 JADE1 단백질이 과다하게 함유되면 세포독성과 [15]부작용이 발생한다.세포는 아포토시스와 유사하지는 않지만 비정상적인 형상의 염색 세포와 큰 다엽핵을 [15]포함한 심각한 세포 주기 장애를 시사하는 형태학적 변화를 겪는다.JADE1S 매개 세포 주기 조절에 기초하여 다른 해석을 고려한다. JADE1 과부하는 아포토시스의 [15]직접적인 전사 활성화보다는 노컷 장기화와 사이토키네시스 정지 또는 심각한 세포 주기 불균형을 야기할 수 있다.
생물학적 역할
JADE1의 생물학적 역할은 아직 밝혀지지 않았다.마우스 모델을 사용하여 이 문제를 해결하는 출판물은 한정되어 있습니다.2003년에 발표된 가장 포괄적인 연구는 쥐의 인간 JADE1, JADE1의 철자를 확인하고 쥐의 태생 [6]동안 제이드1의 발현을 조사했다.저자들은 발달적으로 조절된 유전자를 찾기 위해 유전자 트랩 스크린 분석을 사용하여 생쥐 제이드1을 배아 발생 중에 강하게 조절된 유전자로 식별했다.제이드1유전자의 제3인트론에 벡터를 삽입하면 47-아미노산 절단단백질이 생성된다.유전자 트랩 삽입 돌연변이는 Jade1-beta-galactosidase reporter fusion product와 Jade1 null allele을 생성했다.유전자 트랩 통합을 위한 호모 접합체는 강력한 발달 표현형을 생성하지 않았지만, 융합 제품은 생쥐 배아 세포와 15.5-d.p.c.까지 발달하는 배아의 조직에서 Jade1 유전자 시공간적 발현을 밝혀냈다.또한 Jade1 mRNA 전사물, Jade1 유전자 구조 및 쥐와 얼룩말 [6]물고기의 Jade1 단백질 오솔로그 분석에 대한 실험 및 실리코 비교 분석을 보고했습니다.Jade1 발현은 혈관 형성에 중요한 태반 성분인 태반 외배엽 및 영양아세포와 신경 전구체(2)를 포함한 다기능 또는 조직 특이적 전구체로 농축된 부위에서 검출되었다.이러한 영역에서 Jade1 리포터 표현의 역학은 [6]연구의 중요한 지점인 전방 후방 축의 결정과 연장에 관여함을 나타낸다.배아줄기세포 및 배아암세포 배양 재생에서 인간 JADE1의 잠재적 역할은 배양줄기세포 전사인자 OCT4 경로의 줄기세포 활성화에서 줄기세포인자 NANOG, PHC1, USP44 및 SOX2와 [59]함께 JADE1 유전자 발현을 상향 조절하는 것을 보여주는 또 다른 선별 연구에서 제시되었다.상피세포 증식에서 JADE1의 역할은 급성 신장 손상 및 [14][29]재생의 쥐 모델에서 다루어졌다.관상피세포 [29]재생에서 HBO1-JADE1S/L의 발현 패턴과 역학을 조사하였다.허혈과 재관류 손상은 JADE1S, JADE1L 및 HBO1 단백질 수치를 초기에 감소시켰으며, 이는 신장 회복 중 기준치로 되돌아왔다.HBO1과 JADE1S의 발현 수준은 세포 증식 속도가 최대치에 도달함에 따라 회복된 반면 JADE1L은 대량 증식 감소 후 회복되었다.JADE1의 시간적 표현은 히스톤 H4(H4K5 및 H4K12)의 아세틸화와 상관관계가 있지만 히스톤 H3(H4K14)의 시간적 표현은 JADE1-HBO1 복합체가 상피세포 증식 중에 특히 H4를 표시함을 시사한다.이 연구 결과는 급성 신장 손상에 JADE1-HBO1 복합체를 포함하며 상피 세포 [29]회복 중 JADE1 동질 형태에 대한 뚜렷한 역할을 시사한다.
질병 관련성
인간 질병에서 JADE1의 역할은 아직 밝혀지지 않았다.최근 한 [60]연구는 골수암인 골수섬유증의 새로운 아현미경 유전자 변화를 찾아냈다.연구는 일차 골수 섬유증 환자의 작은 코호트에서 7개의 새로운 결손과 전이를 확인했다.JADE1과 Sodium channel 및 Clathrin linker 1(SCLT1)이라고 불리는 인접 유전자가 유의하게 수정되었다.돌연변이의 결과로, JADE1 유전자는 인트론 5-6과 엑손 6-11의 결실을 가지고 있으며, 이는 PHD 아연 손가락에서 시작하는 단백질 덩어리가 많이 빠진 JADE1을 생성하게 된다.병인에 대한 관련성은 조사 중이다.소수의 파일럿 연구에서 대장암과 신장암에서 JADE1 발현을 검사했다.이 연구들의 결과가 항상 일치하지는 않는다.일부 연구의 결과는 주로 JADE1에 대한 특성 없는 특이성을 가진 JADE1 항체, 특히 [61][62]JADE1S 또는 JADE1L을 이용한 종양 검체의 조직 화학적 분석에서 발생한다.in silico microarray 알고리즘을 이용한 연구 결과에 따르면 PHF17 mRNA가 췌장암 [63]발생에 영향을 미칠 수 있다.이러한 유망한 조사 라인은 추가 통제와 추가 평가가 필요하다.
상호 작용
pVHL,[11] TIP60,[25] HBO1, ING4, ING5,[28] β-catenin,[49] NPHP4를 [40]포함한 여러 단백질이 JADE1과 상호작용한다.
메모들
 | 이 기사의 2016년 버전은 외부 전문가에 의해 이중 출판 모델로 업데이트되었습니다.대응하는 학술 동료 리뷰 기사는 Gene에 게재되었으며 다음과 같이 인용할 수 있다. Maria V Panchenko (4 May 2016). "Structure, function and regulation of jade family PHD finger 1 (JADE1)". Gene. Gene Wiki Review Series. 589 (1): 1–11. doi:10.1016/J.GENE.2016.05.002. ISSN 0378-1119. PMC 4903948. PMID 27155521. Wikidata Q38828242. |
레퍼런스
- ^ a b c GRCh38: 앙상블 릴리즈 89: ENSG000077684 - 앙상블, 2017년 5월
- ^ a b c GRCm38: 앙상블 릴리즈 89: ENSMUSG000025764 - 앙상블, 2017년 5월
- ^ "Human PubMed Reference:". National Center for Biotechnology Information, U.S. National Library of Medicine.
- ^ "Mouse PubMed Reference:". National Center for Biotechnology Information, U.S. National Library of Medicine.
- ^ Nagase T, Nakayama M, Nakajima D, Kikuno R, Ohara O (April 2001). "Prediction of the coding sequences of unidentified human genes. XX. The complete sequences of 100 new cDNA clones from brain which code for large proteins in vitro". DNA Research. 8 (2): 85–95. doi:10.1093/dnares/8.2.85. PMID 11347906.
- ^ a b c d e f g h Tzouanacou E, Tweedie S, Wilson V (December 2003). "Identification of Jade1, a gene encoding a PHD zinc finger protein, in a gene trap mutagenesis screen for genes involved in anteroposterior axis development". Molecular and Cellular Biology. 23 (23): 8553–2. doi:10.1128/mcb.23.23.8553-8562.2003. PMC 262661. PMID 14612400.
- ^ Zhou MI, Wang H, Ross JJ, Kuzmin I, Xu C, Cohen HT (October 2002). "The von Hippel-Lindau tumor suppressor stabilizes novel plant homeodomain protein Jade-1". The Journal of Biological Chemistry. 277 (42): 39887–98. doi:10.1074/jbc.M205040200. PMID 12169691.
- ^ "Entrez Gene: PHF17 PHD finger protein 17".
- ^ a b Nagase T, Nakayama M, Nakajima D, Kikuno R, Ohara O (April 2001). "Prediction of the coding sequences of unidentified human genes. XX. The complete sequences of 100 new cDNA clones from brain which code for large proteins in vitro". DNA Research. 8 (2): 85–95. doi:10.1093/dnares/8.2.85. PMID 11347906.
- ^ Thompson KA, Wang B, Argraves WS, Giancotti FG, Schranck DP, Ruoslahti E (February 1994). "BR140, a novel zinc-finger protein with homology to the TAF250 subunit of TFIID". Biochemical and Biophysical Research Communications. 198 (3): 1143–52. doi:10.1006/bbrc.1994.1162. PMID 7906940.
- ^ a b c d e f g h Zhou MI, Wang H, Ross JJ, Kuzmin I, Xu C, Cohen HT (October 2002). "The von Hippel-Lindau tumor suppressor stabilizes novel plant homeodomain protein Jade-1". The Journal of Biological Chemistry. 277 (42): 39887–98. doi:10.1074/jbc.M205040200. PMID 12169691.
- ^ Szelei J, Soto AM, Geck P, Desronvil M, Prechtl NV, Weill BC, Sonnenschein C (March 2000). "Identification of human estrogen-inducible transcripts that potentially mediate the apoptotic response in breast cancer". The Journal of Steroid Biochemistry and Molecular Biology. 72 (3–4): 89–102. doi:10.1016/s0960-0760(00)00025-x. PMID 10775800. S2CID 25912630.
- ^ "Protein Jade-1 (Q6IE81)". InterPro.
- ^ a b c d e f g Siriwardana NS, Meyer R, Havasi A, Dominguez I, Panchenko MV (2014). "Cell cycle-dependent chromatin shuttling of HBO1-JADE1 histone acetyl transferase (HAT) complex". Cell Cycle. 13 (12): 1885–901. doi:10.4161/cc.28759. PMC 4111752. PMID 24739512.
- ^ a b c d e f g h i j k Siriwardana NS, Meyer RD, Panchenko MV (2015). "The novel function of JADE1S in cytokinesis of epithelial cells". Cell Cycle. 14 (17): 2821–34. doi:10.1080/15384101.2015.1068476. PMC 4612376. PMID 26151225.
- ^ a b Borgal L, Rinschen MM, Dafinger C, Hoff S, Reinert MJ, Lamkemeyer T, Lienkamp SS, Benzing T, Schermer B (September 2014). "Casein kinase 1 α phosphorylates the Wnt regulator Jade-1 and modulates its activity". The Journal of Biological Chemistry. 289 (38): 26344–56. doi:10.1074/jbc.M114.562165. PMC 4176241. PMID 25100726.
- ^ "JADE1 – Search – Homo sapiens – Ensembl genome browser 84".
- ^ Wysocka J, Swigut T, Xiao H, Milne TA, Kwon SY, Landry J, Kauer M, Tackett AJ, Chait BT, Badenhorst P, Wu C, Allis CD (July 2006). "A PHD finger of NURF couples histone H3 lysine 4 trimethylation with chromatin remodelling". Nature. 442 (7098): 86–90. Bibcode:2006Natur.442...86W. doi:10.1038/nature04815. PMID 16728976. S2CID 4389087.
- ^ Shi X, Hong T, Walter KL, Ewalt M, Michishita E, Hung T, Carney D, Peña P, Lan F, Kaadige MR, Lacoste N, Cayrou C, Davrazou F, Saha A, Cairns BR, Ayer DE, Kutateladze TG, Shi Y, Côté J, Chua KF, Gozani O (July 2006). "ING2 PHD domain links histone H3 lysine 4 methylation to active gene repression". Nature. 442 (7098): 96–9. Bibcode:2006Natur.442...96S. doi:10.1038/nature04835. PMC 3089773. PMID 16728974.
- ^ Taverna SD, Ilin S, Rogers RS, Tanny JC, Lavender H, Li H, Baker L, Boyle J, Blair LP, Chait BT, Patel DJ, Aitchison JD, Tackett AJ, Allis CD (December 2006). "Yng1 PHD finger binding to H3 trimethylated at K4 promotes NuA3 HAT activity at K14 of H3 and transcription at a subset of targeted ORFs". Molecular Cell. 24 (5): 785–96. doi:10.1016/j.molcel.2006.10.026. PMC 4690528. PMID 17157260.
- ^ Sanchez R, Zhou MM (July 2011). "The PHD finger: a versatile epigenome reader". Trends in Biochemical Sciences. 36 (7): 364–72. doi:10.1016/j.tibs.2011.03.005. PMC 3130114. PMID 21514168.
- ^ Kwan AH, Gell DA, Verger A, Crossley M, Matthews JM, Mackay JP (July 2003). "Engineering a protein scaffold from a PHD finger". Structure. 11 (7): 803–13. doi:10.1016/s0969-2126(03)00122-9. PMID 12842043.
- ^ Mansfield RE, Musselman CA, Kwan AH, Oliver SS, Garske AL, Davrazou F, Denu JM, Kutateladze TG, Mackay JP (April 2011). "Plant homeodomain (PHD) fingers of CHD4 are histone H3-binding modules with preference for unmodified H3K4 and methylated H3K9". The Journal of Biological Chemistry. 286 (13): 11779–91. doi:10.1074/jbc.M110.208207. PMC 3064229. PMID 21278251.
- ^ Matthews JM, Bhati M, Lehtomaki E, Mansfield RE, Cubeddu L, Mackay JP (2009). "It takes two to tango: the structure and function of LIM, RING, PHD and MYND domains". Current Pharmaceutical Design. 15 (31): 3681–96. doi:10.2174/138161209789271861. PMID 19925420.
- ^ a b c d Panchenko MV, Zhou MI, Cohen HT (December 2004). "von Hippel-Lindau partner Jade-1 is a transcriptional co-activator associated with histone acetyltransferase activity". The Journal of Biological Chemistry. 279 (53): 56032–41. doi:10.1074/jbc.M410487200. PMID 15502158.
- ^ a b c d e Saksouk N, Avvakumov N, Champagne KS, Hung T, Doyon Y, Cayrou C, Paquet E, Ullah M, Landry AJ, Côté V, Yang XJ, Gozani O, Kutateladze TG, Côté J (January 2009). "HBO1 HAT complexes target chromatin throughout gene coding regions via multiple PHD finger interactions with histone H3 tail". Molecular Cell. 33 (2): 257–65. doi:10.1016/j.molcel.2009.01.007. PMC 2677731. PMID 19187766.
- ^ a b Doyon Y, Cayrou C, Ullah M, Landry AJ, Côté V, Selleck W, Lane WS, Tan S, Yang XJ, Côté J (January 2006). "ING tumor suppressor proteins are critical regulators of chromatin acetylation required for genome expression and perpetuation". Molecular Cell. 21 (1): 51–64. doi:10.1016/j.molcel.2005.12.007. PMID 16387653.
- ^ a b c d e f g h Foy RL, Song IY, Chitalia VC, Cohen HT, Saksouk N, Cayrou C, Vaziri C, Côté J, Panchenko MV (October 2008). "Role of Jade-1 in the histone acetyltransferase (HAT) HBO1 complex". The Journal of Biological Chemistry. 283 (43): 28817–26. doi:10.1074/jbc.M801407200. PMC 2570895. PMID 18684714.
- ^ a b c d e f g h i Havasi A, Haegele JA, Gall JM, Blackmon S, Ichimura T, Bonegio RG, Panchenko MV (January 2013). "Histone acetyl transferase (HAT) HBO1 and JADE1 in epithelial cell regeneration". The American Journal of Pathology. 182 (1): 152–62. doi:10.1016/j.ajpath.2012.09.017. PMC 3532714. PMID 23159946.
- ^ a b c d Avvakumov N, Lalonde ME, Saksouk N, Paquet E, Glass KC, Landry AJ, Doyon Y, Cayrou C, Robitaille GA, Richard DE, Yang XJ, Kutateladze TG, Côté J (February 2012). "Conserved molecular interactions within the HBO1 acetyltransferase complexes regulate cell proliferation". Molecular and Cellular Biology. 32 (3): 689–703. doi:10.1128/MCB.06455-11. PMC 3266594. PMID 22144582.
- ^ Lalonde ME, Avvakumov N, Glass KC, Joncas FH, Saksouk N, Holliday M, Paquet E, Yan K, Tong Q, Klein BJ, Tan S, Yang XJ, Kutateladze TG, Côté J (September 2013). "Exchange of associated factors directs a switch in HBO1 acetyltransferase histone tail specificity". Genes & Development. 27 (18): 2009–24. doi:10.1101/gad.223396.113. PMC 3792477. PMID 24065767.
- ^ Megee PC, Morgan BA, Smith MM (July 1995). "Histone H4 and the maintenance of genome integrity". Genes & Development. 9 (14): 1716–27. doi:10.1101/gad.9.14.1716. PMID 7622036.
- ^ Maki N, Tsonis PA, Agata K (16 September 2010). "Changes in global histone modifications during dedifferentiation in newt lens regeneration". Molecular Vision. 16: 1893–7. PMC 2956703. PMID 21031136.
- ^ Jasencakova Z, Meister A, Walter J, Turner BM, Schubert I (November 2000). "Histone H4 acetylation of euchromatin and heterochromatin is cell cycle dependent and correlated with replication rather than with transcription". The Plant Cell. 12 (11): 2087–100. doi:10.1105/tpc.12.11.2087. PMC 150160. PMID 11090211.
- ^ Clarke AS, Lowell JE, Jacobson SJ, Pillus L (April 1999). "Esa1p is an essential histone acetyltransferase required for cell cycle progression". Molecular and Cellular Biology. 19 (4): 2515–26. doi:10.1128/mcb.19.4.2515. PMC 84044. PMID 10082517.
- ^ Choy JS, Tobe BT, Huh JH, Kron SJ (November 2001). "Yng2p-dependent NuA4 histone H4 acetylation activity is required for mitotic and meiotic progression". The Journal of Biological Chemistry. 276 (47): 43653–62. doi:10.1074/jbc.M102531200. PMID 11544250.
- ^ Miotto B, Struhl K (January 2010). "HBO1 histone acetylase activity is essential for DNA replication licensing and inhibited by Geminin". Molecular Cell. 37 (1): 57–66. doi:10.1016/j.molcel.2009.12.012. PMC 2818871. PMID 20129055.
- ^ Iizuka M, Matsui T, Takisawa H, Smith MM (February 2006). "Regulation of replication licensing by acetyltransferase Hbo1". Molecular and Cellular Biology. 26 (3): 1098–108. doi:10.1128/MCB.26.3.1098-1108.2006. PMC 1347032. PMID 16428461.
- ^ a b c d Wan G, Hu X, Liu Y, Han C, Sood AK, Calin GA, Zhang X, Lu X (October 2013). "A novel non-coding RNA lncRNA-JADE connects DNA damage signalling to histone H4 acetylation". The EMBO Journal. 32 (21): 2833–47. doi:10.1038/emboj.2013.221. PMC 3817469. PMID 24097061.
- ^ a b c d Borgal L, Habbig S, Hatzold J, Liebau MC, Dafinger C, Sacarea I, Hammerschmidt M, Benzing T, Schermer B (July 2012). "The ciliary protein nephrocystin-4 translocates the canonical Wnt regulator Jade-1 to the nucleus to negatively regulate β-catenin signaling". The Journal of Biological Chemistry. 287 (30): 25370–80. doi:10.1074/jbc.M112.385658. PMC 3408186. PMID 22654112.
- ^ a b Prekeris R (2015). "Cut or NoCut: the role of JADE1S in regulating abscission checkpoint". Cell Cycle. 14 (20): 3219. doi:10.1080/15384101.2015.1089074. PMC 4825624. PMID 26327571.
- ^ Agromayor M, Martin-Serrano J (September 2013). "Knowing when to cut and run: mechanisms that control cytokinetic abscission". Trends in Cell Biology. 23 (9): 433–41. doi:10.1016/j.tcb.2013.04.006. PMID 23706391.
- ^ Elia N, Sougrat R, Spurlin TA, Hurley JH, Lippincott-Schwartz J (March 2011). "Dynamics of endosomal sorting complex required for transport (ESCRT) machinery during cytokinesis and its role in abscission". Proceedings of the National Academy of Sciences of the United States of America. 108 (12): 4846–51. Bibcode:2011PNAS..108.4846E. doi:10.1073/pnas.1102714108. PMC 3064317. PMID 21383202.
- ^ Fabbro M, Zhou BB, Takahashi M, Sarcevic B, Lal P, Graham ME, Gabrielli BG, Robinson PJ, Nigg EA, Ono Y, Khanna KK (October 2005). "Cdk1/Erk2- and Plk1-dependent phosphorylation of a centrosome protein, Cep55, is required for its recruitment to midbody and cytokinesis". Developmental Cell. 9 (4): 477–88. doi:10.1016/j.devcel.2005.09.003. PMID 16198290.
- ^ Green RA, Paluch E, Oegema K (2012). "Cytokinesis in animal cells". Annual Review of Cell and Developmental Biology. 28: 29–58. doi:10.1146/annurev-cellbio-101011-155718. PMID 22804577.
- ^ Hu CK, Coughlin M, Mitchison TJ (March 2012). "Midbody assembly and its regulation during cytokinesis". Molecular Biology of the Cell. 23 (6): 1024–34. doi:10.1091/mbc.E11-08-0721. PMC 3302730. PMID 22278743.
- ^ Nigg EA, Stearns T (October 2011). "The centrosome cycle: Centriole biogenesis, duplication and inherent asymmetries". Nature Cell Biology. 13 (10): 1154–60. doi:10.1038/ncb2345. PMC 3947860. PMID 21968988.
- ^ Sluder G, Khodjakov A (December 2010). "Centriole duplication: analogue control in a digital age". Cell Biology International. 34 (12): 1239–45. doi:10.1042/CBI20100612. PMC 3051170. PMID 21067522.
- ^ a b c d Chitalia VC, Foy RL, Bachschmid MM, Zeng L, Panchenko MV, Zhou MI, Bharti A, Seldin DC, Lecker SH, Dominguez I, Cohen HT (October 2008). "Jade-1 inhibits Wnt signalling by ubiquitylating beta-catenin and mediates Wnt pathway inhibition by pVHL". Nature Cell Biology. 10 (10): 1208–16. doi:10.1038/ncb1781. PMC 2830866. PMID 18806787.
- ^ a b Zhou MI, Foy RL, Chitalia VC, Zhao J, Panchenko MV, Wang H, Cohen HT (August 2005). "Jade-1, a candidate renal tumor suppressor that promotes apoptosis". Proceedings of the National Academy of Sciences of the United States of America. 102 (31): 11035–40. Bibcode:2005PNAS..10211035Z. doi:10.1073/pnas.0500757102. PMC 1182408. PMID 16046545.
- ^ a b c Zhou MI, Wang H, Foy RL, Ross JJ, Cohen HT (February 2004). "Tumor suppressor von Hippel-Lindau (VHL) stabilization of Jade-1 protein occurs through plant homeodomains and is VHL mutation dependent". Cancer Research. 64 (4): 1278–86. doi:10.1158/0008-5472.can-03-0884. PMID 14973063.
- ^ Crossey PA, Richards FM, Foster K, Green JS, Prowse A, Latif F, Lerman MI, Zbar B, Affara NA, Ferguson-Smith MA (August 1994). "Identification of intragenic mutations in the von Hippel-Lindau disease tumour suppressor gene and correlation with disease phenotype". Human Molecular Genetics. 3 (8): 1303–8. doi:10.1093/hmg/3.8.1303. PMID 7987306.
- ^ Foster K, Prowse A, van den Berg A, Fleming S, Hulsbeek MM, Crossey PA, Richards FM, Cairns P, Affara NA, Ferguson-Smith MA (December 1994). "Somatic mutations of the von Hippel-Lindau disease tumour suppressor gene in non-familial clear cell renal carcinoma". Human Molecular Genetics. 3 (12): 2169–73. doi:10.1093/hmg/3.12.2169. PMID 7881415.
- ^ Duan DR, Humphrey JS, Chen DY, Weng Y, Sukegawa J, Lee S, Gnarra JR, Linehan WM, Klausner RD (July 1995). "Characterization of the VHL tumor suppressor gene product: localization, complex formation, and the effect of natural inactivating mutations". Proceedings of the National Academy of Sciences of the United States of America. 92 (14): 6459–63. Bibcode:1995PNAS...92.6459D. doi:10.1073/pnas.92.14.6459. PMC 41537. PMID 7604013.
- ^ a b Maxwell PH, Wiesener MS, Chang GW, Clifford SC, Vaux EC, Cockman ME, Wykoff CC, Pugh CW, Maher ER, Ratcliffe PJ (May 1999). "The tumour suppressor protein VHL targets hypoxia-inducible factors for oxygen-dependent proteolysis". Nature. 399 (6733): 271–5. Bibcode:1999Natur.399..271M. doi:10.1038/20459. PMID 10353251. S2CID 4427694.
- ^ Latif F, Tory K, Gnarra J, Yao M, Duh FM, Orcutt ML, Stackhouse T, Kuzmin I, Modi W, Geil L (May 1993). "Identification of the von Hippel-Lindau disease tumor suppressor gene". Science. 260 (5112): 1317–20. Bibcode:1993Sci...260.1317L. doi:10.1126/science.8493574. PMID 8493574.
- ^ Jaakkola P, Mole DR, Tian YM, Wilson MI, Gielbert J, Gaskell SJ, von Kriegsheim A, Hebestreit HF, Mukherji M, Schofield CJ, Maxwell PH, Pugh CW, Ratcliffe PJ (April 2001). "Targeting of HIF-alpha to the von Hippel-Lindau ubiquitylation complex by O2-regulated prolyl hydroxylation". Science. 292 (5516): 468–72. Bibcode:2001Sci...292..468J. doi:10.1126/science.1059796. PMID 11292861. S2CID 20914281.
- ^ Gossage L, Eisen T, Maher ER (January 2015). "VHL, the story of a tumour suppressor gene". Nature Reviews. Cancer. 15 (1): 55–64. doi:10.1038/nrc3844. PMID 25533676. S2CID 19312746.
- ^ Jung M, Peterson H, Chavez L, Kahlem P, Lehrach H, Vilo J, Adjaye J (21 May 2010). "A data integration approach to mapping OCT4 gene regulatory networks operative in embryonic stem cells and embryonal carcinoma cells". PLOS ONE. 5 (5): e10709. Bibcode:2010PLoSO...510709J. doi:10.1371/journal.pone.0010709. PMC 2873957. PMID 20505756.
- ^ Lasho T, Johnson SH, Smith DI, Crispino JD, Pardanani A, Vasmatzis G, Tefferi A (September 2013). "Identification of submicroscopic genetic changes and precise breakpoint mapping in myelofibrosis using high resolution mate-pair sequencing". American Journal of Hematology. 88 (9): 741–6. doi:10.1002/ajh.23495. PMID 23733509. S2CID 5232311.
- ^ Lian X, Duan X, Wu X, Li C, Chen S, Wang S, Cai Y, Weng Z (August 2012). "Expression and clinical significance of von Hippel-Lindau downstream genes: Jade-1 and β-catenin related to renal cell carcinoma". Urology. 80 (2): 485.e7–13. doi:10.1016/j.urology.2012.02.024. PMID 22516360.
- ^ Lim SR, Gooi BH, Singh M, Gam LH (November 2011). "Analysis of differentially expressed proteins in colorectal cancer using hydroxyapatite column and SDS-PAGE". Applied Biochemistry and Biotechnology. 165 (5–6): 1211–24. doi:10.1007/s12010-011-9339-3. PMID 21863284. S2CID 13272576.
- ^ Liu PF, Jiang WH, Han YT, He LF, Zhang HL, Ren H (28 August 2015). "Integrated microRNA-mRNA analysis of pancreatic ductal adenocarcinoma". Genetics and Molecular Research. 14 (3): 10288–97. doi:10.4238/2015.August.28.14. PMID 26345967.
추가 정보
- Tzouanacou E, Tweedie S, Wilson V (December 2003). "Identification of Jade1, a gene encoding a PHD zinc finger protein, in a gene trap mutagenesis screen for genes involved in anteroposterior axis development". Molecular and Cellular Biology. 23 (23): 8553–2. doi:10.1128/MCB.23.23.8553-8562.2003. PMC 262661. PMID 14612400.
- Panchenko MV, Zhou MI, Cohen HT (December 2004). "von Hippel-Lindau partner Jade-1 is a transcriptional co-activator associated with histone acetyltransferase activity". The Journal of Biological Chemistry. 279 (53): 56032–41. doi:10.1074/jbc.M410487200. PMID 15502158.
- Zhou MI, Foy RL, Chitalia VC, Zhao J, Panchenko MV, Wang H, Cohen HT (August 2005). "Jade-1, a candidate renal tumor suppressor that promotes apoptosis". Proceedings of the National Academy of Sciences of the United States of America. 102 (31): 11035–40. Bibcode:2005PNAS..10211035Z. doi:10.1073/pnas.0500757102. PMC 1182408. PMID 16046545.
- Doyon Y, Cayrou C, Ullah M, Landry AJ, Côté V, Selleck W, Lane WS, Tan S, Yang XJ, Côté J (January 2006). "ING tumor suppressor proteins are critical regulators of chromatin acetylation required for genome expression and perpetuation". Molecular Cell. 21 (1): 51–64. doi:10.1016/j.molcel.2005.12.007. PMID 16387653.
- Lim J, Hao T, Shaw C, Patel AJ, Szabó G, Rual JF, Fisk CJ, Li N, Smolyar A, Hill DE, Barabási AL, Vidal M, Zoghbi HY (May 2006). "A protein-protein interaction network for human inherited ataxias and disorders of Purkinje cell degeneration". Cell. 125 (4): 801–14. doi:10.1016/j.cell.2006.03.032. PMID 16713569. S2CID 13709685.
- Olsen JV, Blagoev B, Gnad F, Macek B, Kumar C, Mortensen P, Mann M (November 2006). "Global, in vivo, and site-specific phosphorylation dynamics in signaling networks". Cell. 127 (3): 635–48. doi:10.1016/j.cell.2006.09.026. PMID 17081983. S2CID 7827573.
외부 링크
- PHF17+단백질+미국 국립의학도서관의 의학 주제 제목(MeSH)


