극피동물
Echinoderm| 극피동물 시간 범위: | |
|---|---|
 | |
| 현존하는 다섯 종류의 극피동물: 원생동물 린키이(Astoreaster linckii), 극피동물 스콜로펜드리나(Ophiocoma scolopendrina), 극피동물(Stomopneustes variolaris(Echinoidea), 옥시코만투스 베넷티(Crinoidea), 극피동물(Holatiidea) | |
과학적 분류  | |
| 왕국: | 애니멀리아 |
| 서브킹덤: | 우메타조아 |
| Clade: | 파라호소조아목 |
| Clade: | 빌라테리아 |
| Clade: | 네프로조아목 |
| 슈퍼문: | 신우테로스토미아 |
| Clade: | 앰뷸라리아 |
| 문: | 에키노데르마타 브루기에르, 1791년 [ex Klein, 1734년] |
| 표준속 | |
| 에키누스 린네, 1758년 | |
| 하위종과 클래스[1] | |
| Homalozoa © Gill & Caster, 1960년
블라스토조아 » = = extinct | |
극피동물(/ɪkannədrm, ɛk--/)[2]은 극피동물문(/ˌkanonoʊdrmt/)의 구성원이다.성충은 불가사리, 부서지기 쉬운 별, 성게, 모래 달러, 해삼뿐만 아니라 백합이나 "돌백합"[3]을 포함한 반지름 대칭으로 알아볼 수 있다.성체 극피층은 조간대부터 심해대까지 모든 해저에서 발견됩니다.이 문에는 약 7,000종의 생물이 있으며, 중수체(deuterostome) 중 척색체 다음으로 큰 집단이다.극피동물들은 완전히 해양문 중 가장 크다.최초의 극피엽은 캄브리아기가 시작될 무렵에 나타났다.
극피층은 생태학적으로나 지질학적으로나 중요하다.생태학적으로, 깊은 바다의 생물 사막과 더 얕은 바다에 그렇게 많은 다른 집단은 거의 없습니다.대부분의 극피동물들은 무성생식을 할 수 있고 조직, 장기, 사지를 재생시킬 수 있다; 어떤 경우에는, 그들은 한 다리에서 완전한 재생을 겪을 수 있다.지질학적으로 극피층의 가치는 많은 석회암 형성의 주요 원인이며 지질 환경에 대한 귀중한 단서를 제공할 수 있는 골격에 있다.그들은 19세기와 20세기에 재생 연구에서 가장 많이 사용된 종이었다.게다가, 일부 과학자들은 극피층의 방사선이 중생대 해양 혁명의 원인이었다고 주장한다.
분류와 진화
The name echinoderm is from from Ancient Greek ἐχῖνος (ekhînos) 'hedgehog', and δέρμα (dérma) 'skin').[4]극피동물들은 양피동물인데, 이는 그들의 조상이 거울과 대칭을 이루었다는 것을 의미한다.양생동물 중에서, 그들은 중수체 분열에 속하는데, 이것은 배아 발달 중에 형성되는 첫 번째 개구부인 배반포가 [5][6]입 대신 항문이 된다는 것을 의미한다.성체 극피질의 특징은 외부 관다리와 석회질 내골격으로 구성된 [7]석회질 내골격의 소유이다.
계통발생학
역사적으로, 분류학자들은 오피루아상과가 아스테로아상과 자매이거나, 또는 오피루아상과와 [8]자매라고 믿었다.그러나 2014년 모든 종류의 극피질 유전자 219개를 분석한 결과 계통수가 [9]수정됐다.2015년 모든 종류의 극피세포에 걸쳐 23종의 RNA 전사체를 독립적으로 분석한 결과 같은 [8]나무가 나왔다.
- 외부 계통 발생
빌라테리아 내 극피층의 맥락은 다음과 같다.[10]
| 빌라테리아 |
| ||||||||||||||||||||||||||||||


- 내부 계통 발생
| 에치노 |
| ||||||||||||||||||||||||
| 더마타 |


다양성
현존하는 극피엽은 약 7,000종이며, 멸종된 [7][11]종도 약 13,000종의 극피동물도 있다.모든 극피동물들은 해양성이지만, 그들은 얕은 조간 지역에서부터 깊은 해저에 이르는 서식지에서 발견됩니다.전통적으로 두 개의 주요 세분류가 알려져 있다: 더 친숙한 운동성 엘레우테로조아(Asteroidea, 약 1,745종을 가진 별), 뱀부리상과(약 2,300종을 가진 작은 별), 에치노이드아(Echinoidea, 약 900종을 가진 성게와 모래 달러), 홀로투로이드아(Holoturoidea, 약 1,304종을 가진 별).e Pelmatozoa, 그 중 일부는 sessile이고 다른 일부는 motile이다.이들은 꽃차례상과(모양별과 백합, 약 580종)와 멸종된 블라스토이드와 [12][13]파라크리노이드로 구성되어 있다.
- 극피엽의 아편
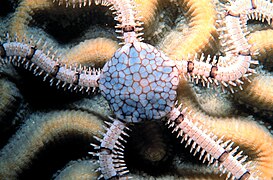
부서지기 쉬운 별 오피오네리스 레티큘라타
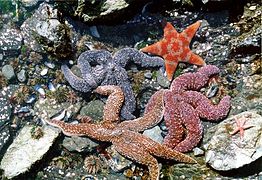
다양한 색의 불가사리

성게, 성게, 성게자루


화석사
가장 오래된 후보 극피화석은 호주의 선캄브리아에서 온 아르카루아이다.이 화석들은 원반 모양으로 가장자리의 요철과 요철로 표시된 오목한 중앙 오목한 부분이 있다.그러나 이들 화석은 수맥계를 나타내는 입체구조나 내부구조가 없어 최종 [14]판별할 수 없다.
최초로 보편적으로 받아들여진 극피층은 하부 캄브리아기에 나타났고, 아스테로조아는 오르도비스기에 나타났으며, 크리노이드는 고생대에 지배적인 그룹이었다.극피층은 광범위한 화석 [15]기록을 남겼다.모든 극피엽의 조상은 입, 내장, 항문을 가진 단순하고, 운동성이 있으며, 좌우 대칭인 동물이었다.이 조상 유기체는 현수식 부착 생활 방식을 채택하여 반경 대칭을 발달시켰다.그럼에도 모든 극피층의 유충은 좌우 대칭이며, 모두 변성 시에 방사 대칭이 된다.그들의 조상처럼, 불가사리와 크리노이드들은 성체 형태로 [16]변하면서 여전히 해저에 붙어있습니다.
최초의 극피층은 [16]비운동성이었지만 자유롭게 움직일 수 있는 동물로 진화했다.이들은 곧 입체구조와 [17]먹이를 주기 위한 외부 섬모 홈을 가진 내골격판을 개발했다.고생대 극피층은 구형으로 기질에 부착되어 있으며 구강 표면이 위를 향하도록 배치되어 있었다.이러한 초기 극피층은 몸의 측면을 따라 뻗어나가는 구배 모양의 홈을 가지고 있었고, 현생 크리노이드의 피놀처럼 양옆으로 양옆으로 갈라져 있었다.결국, 크리노이드를 제외한 모든 극피동물들은 방향을 바꿔 입을 아래로 향하게 되었다.이 일이 일어나기 전에, 포디아는 오늘날의 크리노이드에서와 같이 먹이를 주는 기능을 가지고 있었을 것입니다.포디아의 운동기능은 나중에 입의 방향을 바꾸면서 포디아가 처음으로 [16]기질에 접촉하게 되었을 때 나타났다.
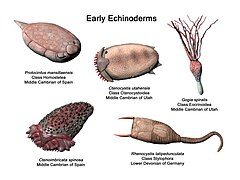
초기 극피동물 Ctenoimbricata, Ctenocystis, Gogia, Protocintus 및 Renocystis

에스토니아 북동부에서 온 오르도비스기의 낭포성 에키노인산염
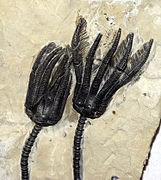
화석 크리노이드 크라운


해부학과 생리학
극피층은 양쪽 대칭을 가진 동물에서 진화했다.성체 극피엽은 오각대칭을 가지고 있지만, 그들의 애벌레는 섬모가 있고 양쪽 대칭을 이루는 자유수영성 유기체이다.나중에, 변성하는 동안, 몸의 왼쪽은 오른쪽을 희생하면서 자라게 되고, 그것은 결국 흡수된다.왼쪽은 5차 대칭의 형태로 성장하며, 이 경우 몸은 [18]중심축을 중심으로 5부분으로 배열됩니다.Asterozoa 내에서는 규칙에서 몇 가지 예외가 있을 수 있습니다.렙타스테리아스속에 속하는 대부분의 불가사리는 팔이 6개이지만, 팔이 5개인 개체는 발생할 수 있습니다.브리징이다도 6개의 팔을 가진 종들을 포함하고 있다.부서지기 쉬운 별 중에는 오피오텔라 다나에, 오피오악티스 사비그니, 오피오노투스 헥사티스와 같은 6개의 팔 종들이 존재하며, 오피오칸타 비비파라는 종종 [19]6개 이상을 가지고 있다.
극피층은 삶의 어떤 단계에서 신체의 일부에 2차 방사 대칭을 가지며, 이는 아마도 침착하거나 느리게 움직이는 [20]존재에 대한 적응일 것이다.많은 크리노이드와 몇몇 바다표범은 기본 5의 배수에서 대칭이다; 라비디아스터 아눌라투스 같은 불가사리는 50개의 팔을 가지고 있는 반면, 바다코마스터 슐레겔리는 200개의 [21]팔을 가지고 있다.
피부와 골격
극피층은 소골이라고 알려진 석회석 기반 판으로 구성된 진피에 중배엽 골격을 가지고 있다.만약 고체라면, 이것들은 무거운 골격을 형성할 것이고,[22][23] 그래서 그들은 입체라고 알려진 스폰지 같은 다공질 구조를 가지고 있다.성게의 테스트와 같이 소골은 함께 융합되거나, 성게의 팔, 부서지기 쉬운 별 및 크리노이드의 팔에서처럼 유연한 관절을 형성하기 위해 관절이 형성될 수 있다.골격은 가시, 과립 또는 사마귀의 형태로 외부로 돌출되어 있을 수 있으며 단단한 표피에 의해 지탱됩니다.골격 요소는 때때로 성게의 "아리스토틀의 등"이라고 불리는 씹는 기관, 크리노이드의 지지 줄기, [18]해삼의 구조적인 "석회 고리"와 같은 특별한 방법으로 배치된다.
비록 개별 골격이 튼튼하고 쉽게 화석화되지만, 불가사리, 부서지기 쉬운 별, 크리노이드의 완전한 골격은 화석 기록에서 드물다.반면에 성게는 종종 분필 바닥이나 석회암에 잘 보존된다.화석화가 진행되는 동안, 스테레오의 공동은 주변의 암석과 연속적인 석회암으로 채워진다.이러한 암석을 파쇄하는 과정에서 고생물학자들은 독특한 균열 패턴과 때로는 복잡한 [24]내부 및 외부 구조까지도 관찰할 수 있다.
표피에는 짙은 빨강, 검은색과 흰색의 줄무늬, 강렬한 [25]보라색을 포함한 극피질의 선명한 색을 제공하는 색소 세포가 포함되어 있습니다.이 세포들은 빛에 민감할 수 있고, 밤이 되면 많은 극피엽들이 완전히 모습을 바꾸게 됩니다.성게 센트로스테파누스 롱이스피누스는 [26]빛에 노출되면 불과 50분 만에 색이 변한다.
대부분의 극피층의 특징 중 하나는 캐치 결합 조직으로 알려진 특별한 종류의 조직이다.이 콜라겐 소재는 근육에 의한 것이 아니라 신경 제어 하에 기계적 특성을 바꿀 수 있습니다.이 조직은 불가사리가 해저에서 유연하게 움직이는 것에서 이매패류 연체동물을 비집고 들어가거나 틈새에서 자신을 꺼내는 것을 막으면서 단단해지는 것을 가능하게 한다.비슷하게,[27][28] 성게는 공격을 받았을 때 방어 메커니즘으로 정상적으로 움직이는 가시를 똑바로 고정시킬 수 있습니다.
수맥계

극피층은 독특한 물 혈관 시스템, 가스 교환, 공급, 감각 수용 및 이동에 기능하는 강골(체강)에서 유래한 유체 충전 관의 네트워크를 가지고 있습니다.이 시스템은 극피질 종류에 따라 다르지만, 일반적으로 동물의 흉부(위) 표면에 있는 체 모양의 마드레포라이트를 통해 외부로 개방됩니다.마드레포라이트는 입이나 식도를 둘러싸고 있는 고리 모양의 관으로 뻗어나가는 가느다란 관인 석관과 연결되어 있습니다.고리 모양 운하는 일련의 방사형 운하로 나뉘는데, 소행성에서는 팔을 따라 뻗어나가고, 에키노이드에서는 보행부 영역에서 실험에 인접합니다.요골관으로부터 갈라진 짧은 외측관은 각각 암풀라로 끝납니다.앰풀라의 일부는 모공(또는 성게의 한 쌍의 모공)을 통해 외부로 돌출되어 단상 또는 튜브 발을 형성할 수 있습니다.수혈관은 동물의 몸 전체에 영양분을 분배하는 것을 돕는다; 그것은 발과 내부 [29][30]앰풀 사이의 체액의 재배포에 의해 늘어나거나 수축될 수 있는 튜브 발에서 가장 잘 보인다.
물 혈관계의 구성은 오피루이드에서 다소 다르다. 오피루이드에서는 마드레포라이트가 구강 표면에 있을 수 있고 포디아에는 [31]어리버리들이 없을 수 있다.홀로튜로이드에서는 시스템이 축소되고, 종종 특수한 먹이 촉수 외에 튜브피트가 거의 없어지고, 마드레포라이트는 강골에 개방됩니다.아포디다와 같은 홀로튜로이드는 몸을 따라 튜브 다리와 관이 없고, 다른 것들은 세로 [32]관을 가지고 있다.크리노이드의 배열은 소행성과 비슷하지만, 튜브 발에는 어리버리들이 없고 팔로 포획한 음식 입자를 중앙 입 쪽으로 전달하기 위해 앞뒤로 흔들리는 움직임에 사용됩니다.소행성에서는 같은 움직임이 [33]지상을 가로질러 동물을 이동시키기 위해 사용된다.
기타 장기
극피층은 동물의 식단에 따라 다른 단순한 소화기 계통을 가지고 있다.불가사리는 대부분 육식동물이며 입, 식도, 위, 장, 직장이 있으며 항문은 배꼽의 신체 표면 중앙에 위치해 있다.몇 가지 예외를 제외하고, 팍실로시다목의 [34][35]일원들은 항문을 가지고 있지 않다.많은 불가사리 종에서, 큰 심장 위는 몸 밖에서 음식을 소화시키기 위해 자라날 수 있다.몇몇 다른 종들은 [36]연체동물과 같은 모든 음식을 섭취할 수 있다.다양한 식단을 가진 부서지기 쉬운 별들은 장이나 항문이 없는 맹장을 가지고 있다; 그들은 [37]음식 쓰레기를 입으로 배출한다.성게는 초식동물이며 주로 해조류인 그들의 음식을 뜯어내고, 찢고, 씹기 위해 그들의 특화된 입 부분을 사용합니다.그들은 식도, 큰 위, 그리고 항문이 [38]검사의 정점에 있는 직장이 있다.해삼은 대부분 해로운 식물로, 입 주위에 변형된 튜브 발로 퇴적물을 분류하고 있습니다. 즉, 구강 촉수입니다.모래와 진흙은 긴 코일 장과 큰 클로아카를 가진 단순한 내장을 통해 먹이를 동반합니다.[39]크리노이드는 매달린 먹이를 주는 동물로, 뻗은 팔로 흘러들어가는 플랑크톤을 수동적으로 잡습니다.점액에 갇힌 음식의 덩어리는 짧은 식도와 긴 [40]장으로 이루어진 고리에 의해 항문과 연결된 입으로 전달됩니다.
극피층의 강낭은 복잡하다.수맥계 외에도 극피층은 혈액실질, 자궁주위실질, 성선실질 및 종종 근막실질도 [41]가지고 있다.발달 과정에서 극피질 강장은 메타코엘, 메소코엘, 프로토코엘(각각 [42]소마토코엘, 하이드로코엘, 액소코엘이라고도 함)로 나뉜다.수혈 시스템, 혈액 시스템 및 골막 시스템이 관상 강골 시스템을 [43]형성합니다.극피층은 대부분의 동물 그룹이 둘 [44]중 하나만 가지고 있기 때문에 강골 순환계와 혈액 순환계를 모두 가지고 있는 것은 이례적이다.
혈액 및 근막 시스템은 원래의 강장에서 파생되어 개방적이고 감소된 순환 시스템을 형성한다.일반적으로 중앙 링과 5개의 방사형 혈관으로 구성됩니다.진정한 심장은 없고 혈액에는 호흡 색소가 부족한 경우가 많다.가스 교환은 불가사리의 피부 분지 또는 구진, 부서지기 쉬운 별의 생식기 버즈, 성게의 주골 아가미, 해삼의 클로카 나무 등을 통해 일어납니다.가스 교환은 튜브 피트를 통해서도 이루어집니다.극피층은 특별한 배설 기관이 없기 때문에 주로 암모니아 형태의 질소 폐기물이 호흡 [29]표면을 통해 확산됩니다.
강장액에는 강낭세포, 즉 면역세포가 포함되어 있습니다.면역 세포에는 여러 종류가 있는데, 종류와 종류에 따라 다르다.모든 클래스는 침입 입자와 감염된 세포, 골재 또는 응괴를 삼키는 일종의 식세포 아메보세포를 가지고 있으며 세포독성에 관여할 수 있다.이 세포들은 보통 크고 입상하며 잠재적인 [45]병원균에 대한 주요 방어선으로 여겨진다.종류에 따라 극피층은 구상세포(세포독성, 염증, 항균작용), 진동세포(강골액 이동 및 응고작용) 및 결정세포([45][46]해삼의 삼투압 조절에 도움이 될 수 있음)를 가질 수 있다.실모세포는 박테리아에 대한 항균 펩타이드를 분비하고, 여전히 [47]특징지어지고 있는 선천적인 면역 시스템의 일부로서 렉틴과 보충 단백질을 가지고 있다.
극피세포는 간결한 요골신경계를 가지고 있는데, 이것은 중앙 뇌가 없는 상호 연결된 뉴런의 변형된 신경망으로 구성되어 있다.신경은 입 주변의 중앙 고리에서 각 팔이나 체벽을 따라 방사됩니다. 이러한 신경의 가지는 유기체의 움직임과 튜브 발의 동기화를 조정합니다.불가사리는 상피에 감각세포가 있고 팔 끝에 간단한 눈구멍과 촉수에 민감한 촉수 같은 관발을 가지고 있다.성게는 특별한 감각기관이 없지만 중력배향에 도움이 되는 적혈구를 가지고 있으며, 표피, 특히 튜브 발, 가시, 족저에 감각세포를 가지고 있다.부서지기 쉬운 별, 크리노이드, 해삼은 일반적으로 감각 기관이 없지만, 아포디다목의 굴 속 해삼은 각 요골 신경에 인접한 단일 정낭을 가지고 있고, 어떤 해삼은 각 [48]촉수 아래에 안구를 가지고 있다.
성게는 적어도 주기적으로 성게와[49] 해삼의 체강 대부분을 차지하고, 부피가 작은 크리노이드, 부서지기 쉬운 별 그리고 불가사리는 각각의 팔에 두 개의 성게를 가지고 있습니다.현대의 극피엽의 조상들은 하나의 생식기 구멍을 가지고 있었다고 여겨지는 반면, 많은 유기체들은 난자나 정자가 방출될 [48]수 있는 여러 개의 생식기를 가지고 있다.
재생

많은 극피동물들은 재생력이 뛰어나다.많은 종들이 일상적으로 팔과 내장을 자가 절제하고 재생한다.해삼은 위협을 느끼면 내장 일부를 배출해 수개월에 걸쳐 재생한다.성게는 지속적으로 손상으로 잃어버린 가시를 대체하는 반면, 성게와 백합은 쉽게 팔을 잃고 재생한다.대부분의 경우,[50][51][52][53] 절단된 팔 하나가 디스크의 적어도 일부가 없으면 새로운 불가사리로 자랄 수 없습니다.그러나 몇몇 종에서는 하나의 팔이 생존하여 완전한 개체로 발달할 수 있으며, 때로는 무성 번식을 [51][52][53]위해 의도적으로 팔을 분리하기도 한다.해삼은 소화기관을 잃은 기간 동안 저장된 영양분을 먹고 살며 물에서 [54]용해된 유기물을 직접 흡수한다.
손실된 부분의 재생은 에피모르포시스(epimorphosis)와 모르팔락시스(morphallaxis)를 모두 포함한다.에피모르포시스 줄기세포(예비 풀 또는 탈분화에 의해 생성된 세포)는 발진을 형성하고 새로운 조직을 생성한다.형태소 재생은 잃어버린 [55]부분을 대체하기 위해 기존 조직의 이동과 재모델링을 포함한다.조직 치환 중 한 유형의 조직이 다른 조직으로 직접 분화하는 것도 [56]관찰된다.
재생산
성적 생식
극피층은 종과 환경 조건에 따라 약 2~3년 후에 성적으로 성숙합니다.거의 모든 종이 수컷과 암컷을 가지고 있지만, 일부는 암수동체이다.난자와 정자 세포는 일반적으로 수정이 이루어지는 개방된 물로 방출된다.정자와 난자의 방출은 보통 달의 주기와 관련하여 일부 종에서 동시에 일어난다.다른 종에서는 번식기에 개체들이 모일 수 있어 성공적인 수정 가능성이 높아진다.세 종의 바다별, 세 개의 부서지기 쉬운 별, 그리고 깊은 해삼에서 내부 수정이 관찰되었다.빛이 침투하지 않는 깊은 해저에서도 극피층은 종종 생식 활동을 [57]동기화합니다.
어떤 극피동물들은 알을 낳는다.이것은 플랑크톤 유충이 충분한 먹이를 찾지 못할 수 있는 냉수종에서 특히 흔하다.이 보관된 알들은 보통 수가 적고 발달하는 배아를 키우기 위해 큰 노른자와 함께 공급된다.불가사리에서, 암컷은 특별한 주머니, 팔 아래, 아치형 몸 아래, 심지어 심장 [58]위에도 알을 가지고 다닐 수 있다.많은 부서지기 쉬운 별들은 암수동체이다; 그들은 종종 알을 낳는다. 대개 구강 표면의 특별한 방에서, 그러나 때때로 난소나 [59]강실에.이러한 불가사리들과 부서지기 쉬운 별들에서, 발달은 보통 양쪽 유충 단계를 [60]거치지 않고 성체 형태로 직접 진행됩니다.몇몇 성게와 한 종의 모래는 알을 충치나 항문 근처로 옮기고,[61] 가시로 알을 제자리에 고정시킵니다.어떤 해삼들은 그들의 구강 촉수를 이용하여 그들의 알을 그들의 밑이나 뒤로 옮기고, 그들이 보관되어 있다.극소수의 종에서, 알은 강실에 보관되어 있으며, 그곳에서 태생적으로 발달하고 나중에 체벽의 [62]파열을 통해 생겨납니다.일부 크리노이드에서 배아는 특별한 번식 주머니에서 발달하는데, 수컷에 의해 방출된 정자가 [63]발견될 때까지 알을 품는다.
무성 생식
- 위의 '재작성' 섹션을 참조하십시오.

바다표범의 한 종류인 오피디아스터 화강암은 처녀생식에 [64]의해 무성생식을 한다.다른 아스테로조아에서는 성충이 성숙할 때까지 무성생식을 한 후 성적으로 번식한다.대부분의 종에서 무성생식은 원반이 둘로 쪼개지는 횡분열로 이루어진다.잃어버린 디스크 영역과 잃어버린 팔 모두 다시 자라기 때문에 개인마다 다양한 [53][65]길이의 팔을 가질 수 있습니다.다시 자라는 동안, 그들은 작은 팔 몇 개와 큰 팔을 가지고 있고, 그래서 종종 "코멧"[52][66]으로 알려져 있다.
다 자란 해삼은 가로 핵분열을 통해 무성생식을 한다.홀로트뇨증은 중간점 앞에서 두 동강 나며 자주 이 방법을 사용한다.두 개의 반쪽은 각각 몇 달 동안 잃어버린 장기를 재생하지만, 없어진 생식기는 종종 매우 느리게 [67]발달한다.
일부 극피류의 애벌레는 무성 생식을 할 수 있다.이것은 불가사리와 부서지기 쉬운 별들 사이에서 오랫동안 발생하는 것으로 알려져 왔지만, 더 최근에는 해삼, 모래 달러, [68]성게에서 관찰되고 있다.이것은 2차 유충으로 발달하는 부분을 자동 선별하거나 싹을 틔우거나 가로로 갈라짐으로써 발생할 수 있습니다.자가 절제된 부분이나 싹은 완전히 형성된 유충으로 직접 발달하거나 위관 또는 배낭 단계를 통과할 수 있습니다.새로운 애벌레는 구강 앞 후드(입 위쪽에 있는 봉우리 같은 구조), 측면 몸통 벽, 후측 팔 또는 [68][69][70]후단에서 자랄 수 있습니다.
복제는 애벌레에게 자원과 개발 시간 모두에서 비용이 많이 듭니다.유충은 먹이가 풍부하거나[71] 최적의 [70]온도 조건일 때 이 과정을 거친다.복제는 [72]변성 과정에서 일반적으로 손실되는 조직을 이용하기 위해 발생할 수 있다.일부 모래 달러의 유충들은 녹은 물고기 점액을 발견하면 자신을 복제하는데,[70][72] 이는 포식자의 존재를 나타냅니다.무성생식은 플랑크티픽 어류로부터 더 잘 빠져나가는 많은 작은 애벌레를 생산하는데, 이것은 이 메커니즘이 항 프레데터 [73]적응일지도 모른다는 것을 암시한다.
유생 발육

발달은 양쪽 대칭의 배아에서 시작되며, 먼저 강낭아세포가 발달한다.위경화는 중수체 내에 극피엽을 두는 "제2의 입"의 개구부를 나타내며, 골격을 수용하는 중배엽은 안쪽으로 이동한다.2차 체강인 강골은 3개의 체강을 분할하여 형성합니다.유충은 종종 플랑크톤이지만, 어떤 종에서는 알이 암컷 안에 있는 반면, 어떤 종에서는 암컷이 유충을 낳는다.[74][75]
애벌레는 여러 단계를 거치는데, 성충의 분류학적 이름이나 생김새에서 유래한 특정한 이름을 가지고 있다.예를 들어, 성게는 '에키노플루테우스' 애벌레를 가지고 있는 반면, 부서지기 쉬운 별은 '오피오플루테우스' 애벌레를 가지고 있다.불가사리는 '비피나리아' 애벌레를 가지고 있는데, 이 애벌레는 다팔의 '브라치올라리아' 애벌레가 된다.해삼의 애벌레는 '오공증'인 반면 크리노이드 유충은 '오공증'이다.이 모든 유충들은 좌우 대칭을 이루며 헤엄치는 섬모의 띠를 가지고 있다; 어떤 유충들은 보통 '플루테우스' 유충으로 알려져 있으며, 팔을 가지고 있다.완전히 발달하면, 그들은 변형을 겪기 위해 해저에 정착하고, 유충의 팔과 내장은 퇴화한다.유충의 왼쪽은 어린 것의 구강 표면으로 발달하고 오른쪽은 배꼽 표면으로 발달합니다.이 단계에서 오각대칭이 [74][76]발달한다.
플랑크톤을 먹는 유충은 물기둥에 서식하며 극피동물들의 조상 유충형으로 여겨지지만 현존하는 극피동물들에서는 68%가 노른자 먹이의 [12]유충을 이용해 발달한다.노른자낭을 제공한다는 것은 알의 수가 줄어들고, 애벌레는 발육 기간이 짧아지며, 분산 잠재력은 줄어들지만 [12]생존 가능성은 더 높아진다는 것을 의미합니다.
분포 및 서식
극피층은 전 세계적으로 바다의 거의 모든 깊이, 위도, 환경에 분포한다.성충은 주로 해저에서 사는 반면, 유충은 종종 원양에서 플랑크톤으로 산다.그러나 Pelagothuroids와 같은 [77]일부 홀로튜로이드 성인들은 원양성체이다.일부 크리노이드는 유사 플랑크토닉으로 떠다니는 통나무와 파편에 부착되지만, 이러한 행동은 따개비 같은 유기체와의 경쟁이 [78]행동의 범위를 제한하기 전에 고생대에서 가장 광범위하게 행해졌다.
생활양식
이동

극피동물들은 주로 튜브 발을 움직이기 위해 사용하지만, 일부 성게들은 그들의 가시를 사용하기도 합니다.튜브 발은 일반적으로 흡착 패드처럼 생긴 끝이 있어 근육의 수축에 의해 진공이 생성될 수 있습니다.이것은 점액 분비의 끈적거림과 결합되어 유착력을 제공합니다.튜브 발은 달라붙은 표면을 따라 움직이는 파도 속에서 수축하고 이완되며, 동물은 [79]천천히 움직인다.
부서지기 쉬운 별은 극피동물 중 가장 민첩하다.어떤 암이든 좌우 대칭 축을 형성할 수 있으며, 전방 또는 후방을 가리킬 수 있습니다.그리고 나서 그 동물은 다른 네 개의 팔에 의해 추진되는 조정된 방식으로 움직인다.이동 중에 추진 팔은 뱀처럼 [80]움직이거나 노를 젓는 동작을 할 수 있습니다.불가사리는 다리가 유연한 피크노포디아속과 같은 속들을 포함하여, 팔을 거의 움직이지 않고 튜브 발을 사용하여 움직인다.구강 표면은 서로 시간이 맞지 않게 움직이는 수천 개의 튜브 피트로 덮여 있지만, 어떤 면에서는 튜브 피트는 동물이 꾸준히 [81]미끄러지면서 조정됩니다.어떤 굴을 파는 불가사리들은 튜브 발에 어리버리들보다는 뾰족한 점이 있고 그들은 더 빠른 [82]속도로 해저 위를 "활주"할 수 있습니다.
성게는 불가사리와 비슷한 방식으로 튜브 발을 이용해 움직인다.어떤 것들은 또한 관절이 있는 가시를 이용하여 몸을 밀거나 지렛대로 움직이거나 기질에서 구강 표면을 들어 올립니다.성게가 뒤집혔을 경우 튜브다리를 기판에 닿을 수 있을 정도로 1개의 외래영역에 연장한 후 인접영역에서 발을 순차적으로 부착하여 교정할 수 있다.어떤 종들은 보통 [83]입 부분으로 표면을 갈아서 바위를 뚫었다.

해삼은 일반적으로 부진한 동물이다.많은 동물들이 연동 운동을 사용하여 해저 표면에서 이동하거나 모래나 진흙을 파헤칠 수 있습니다; 어떤 동물들은 불가사리처럼 기어 다닐 수 있는 짧은 튜브 발을 가지고 있습니다.어떤 종들은 그들의 구강 촉수를 사용하여 그들 자신을 끌고 가는 반면, 다른 종들은 연동 운동이나 율동적인 굴곡으로 헤엄쳐 갑니다.많은 동물들이 균열, 움푹 패인 곳, 굴 속에서 살며 거의 움직이지 않는다.어떤 깊은 물속 종들은 원양성이고 돛이나 지느러미를 [84]형성하는 물갈퀴 유두와 함께 물에 뜰 수 있다.
대부분의 크리노이드는 운동성이지만, 바다 백합은 단단한 기질에 줄기를 통해 붙어있다.대부분의 백합에서 움직임은 그들의 줄기를 구부리고 팔을 굴리고 굴릴 수 있는 것으로 제한된다; 몇몇 종들은 기어서 해저로 이동할 수 있다.바다 깃털은 부착되어 있지 않고 보통 갈라진 틈, 산호 밑 또는 해면 안쪽에 팔만 보이는 부분이 있습니다.어떤 바다 깃털들은 밤에 나타나 먹이를 가진 해류를 더 잘 이용하기 위해 근처의 현지에 자리를 잡는다.많은 종들은 팔의 도움으로 몸을 일으키며 해저 위를 "걷고" 다닐 수 있고 팔을 이용해 헤엄칠 수 있다.그러나 대부분의 바다 깃털 종은 주로 앉아서 생활하며,[85] 그들이 선택한 은신처에서 멀리 움직이지 않습니다.
먹이 주기
먹이의 형태는 극피세포 분류군마다 크게 다르다.크리노이드와 일부 부서지기 쉬운 별들은 수동 필터 공급자로,[86][87] 지나가는 물에서 부유 입자를 얽어매는 경향이 있습니다.대부분의 성게는 풀을 뜯고,[88] 해삼은 퇴적물을 먹고,[89] 불가사리의 대부분은 활발한 [90]사냥꾼이다.
크리노이드는 퍼진 피놀의 튜브 발을 이용해 음식 입자를 잡고, 그것들을 이동 홈으로 옮기고, 점액으로 감싸고,[86] 홈을 따라 늘어선 섬모를 이용해 입으로 전달합니다.크리노이드의 정확한 식사 요구 사항은 거의 연구되지 않았지만, 실험실에서 그들은 [91]규조류를 섭취할 수 있다.
바스켓별은 동물성 플랑크톤을 모으기 위해 분기된 팔을 들어 올리는 현수식 별이고, 다른 부서지기 쉬운 별들은 먹이를 주는 여러 가지 방법을 사용합니다.어떤 것은 서스펜션 피더로, 음식 입자를 들어올린 팔에 점액 가닥, 가시 또는 튜브 발로 고정합니다.다른 것들은 청소부들과 쓰레기 공급자들이다.또 다른 육식동물은 탐욕스러운 육식동물이 되어 유연한 팔에 의해 갑자기 포위되어 수인성 먹잇감을 채찍질할 수 있다.그리고 나서 사지는 음식을 턱과 [87]입으로 옮기기 위해 디스크 아래로 구부립니다.
많은 성게들은 종종 아리스토텔레스 랜턴으로 알려진 특별한 입 부분으로 암석 표면을 덮고 있는 조류의 얇은 층을 긁어내면서 조류를 먹고 삽니다.다른 종들은 튜브 발로 잡을 수 있는 작은 유기체를 먹는다.그들은 또한 죽은 물고기와 다른 동물성 [88]물질을 먹고 살 수도 있다.모래 달러는 식물성 플랑크톤, 잔해, 녹조 조각 [92]및 모래 입자를 둘러싼 박테리아 층을 먹이로 삼을 수 있다.
해삼은 종종 이동성 퇴적물이나 현탁식 사료로서, 먹이를 적극적으로 포획하기 위해 구강 포디아를 사용하고 그 입자들을 구강 안에 개별적으로 채운다.다른 사람들은 많은 양의 퇴적물을 섭취하고 유기물을 흡수하고 소화하기 어려운 미네랄 입자를 그들의 내장으로 통과시킨다.이러한 방식으로 그들은 많은 양의 기질을 교란시키고 처리하며, 종종 해저에 특징적인 퇴적물의 능선을 남깁니다.어떤 해삼은 굴 속, 앞쪽 끝, 그리고 표면의 항문 속에서 침전물을 삼키고 내장을 통과하며 살고 있습니다.다른 굴을 파고드는 사람들은 앞부분에서 위로 살며 이물질이 굴 입구로 떨어지기를 기다리거나 구강 포디아로 [89]근처 표면의 파편을 긁어모으기도 한다.
몇몇 불가사리는 부유식 동물이지만, 거의 모든 불가사리는 사료를 먹거나 육식동물이다.상면에 상륙한 작은 물고기는 족저류(pedicilaria)에 의해 포획될 수 있고 죽은 동물도 소탕될 수 있지만, 주요 먹잇감은 살아있는 무척추동물, 주로 이매패류 연체동물이다.이 중 하나를 먹기 위해 불가사리는 그 위를 움직이며 튜브 발을 붙이고 등을 구부려 밸브에 압력을 가한다.밸브 사이에 작은 틈이 생기면 불가사리는 먹잇감 속에 위 일부를 삽입하고 소화효소를 배출해 부드러운 신체 부위를 천천히 액화시킨다.이매패의 유도근육이 이완됨에 따라 위가 더 많이 삽입되고 소화가 완료되면 위는 현재 액화 이매패류인 불가사리의 원래 위치로 돌아간다.다른 불가사리들은 스펀지, 말미잘, 산호, 잔해,[90] 조류막을 먹기 위해 배를 잡아먹는다.
안티프레데터 방어

영양가가 낮고 소화되지 않는 석회석이 풍부함에도 불구하고, 극피동물들은 뼈 있는 물고기, 상어, 이더 오리, 갈매기, 게, 복족류 연체동물, 다른 극피동물, 해달, 북극 여우 그리고 인간을 포함한 많은 유기체들에 의해 잡아먹힌다.큰 불가사리는 작은 불가사리를 잡아먹는다; 그들이 만들어내는 많은 양의 알과 애벌레는 많은 해양 생물에 의해 소비되는 동물성 플랑크톤의 일부를 형성한다.반면에 크리노이드는 [93]포식으로부터 비교적 자유롭다.
방제제 방어에는 가시, 독소(내장 또는 튜브 발을 통해 전달됨), 해삼에 의한 끈적끈적한 실의 방출 등이 포함됩니다.대부분의 극피 가시가 뭉툭하지만, 왕관 불가사리는 길고 날카롭고, 그것을 덮고 있는 상피에 [94]독소가 포함되어 있어 고통스러운 천자상을 일으킬 수 있다.박리 상태에서 단단한 상태로 빠르게 변할 수 있는 그들의 어획 결합 조직 때문에, 극피층은 갈라진 틈에서 떼어내는 것이 매우 어렵습니다.어떤 해삼은 항문에서 긴 끈적끈적한 실처럼 튀어나와 공격자를 완전히 무력화시킬 수 있는 큐비에르 관을 가지고 있다.해삼은 때때로 체벽을 부수고 내장과 [95]내장을 배출하여 스스로를 방어한다.불가사리와 부서지기 쉬운 별들은 공격을 받았을 때 팔을 떼어내면서 자동 절개술을 받을 수 있다; 이것은 포식자가 도망칠 수 있을 만큼 오랫동안 주의를 분산시킬 수 있다.몇몇 불가사리 종들은 [96]위험으로부터 수영할 수 있다.
생태학

극피동물들은 성체가 해저 생태계에서 중요한 역할을 하는 수많은 무척추동물이고, 유충들은 플랑크톤의 주요 구성요소이다.성인의 생태적 역할로는 성게의 방목, 심장 성게의 퇴적물 처리, 크리노이드와 [12][77]해삼의 현탁과 퇴적물 공급 등이 있다.어떤 성게는 단단한 바위에 구멍을 뚫어 암석을 불안정하게 만들고 영양분을 바다로 방출할 수 있다.산호초도 이런 방식으로 뚫리지만 탄산염 물질의 부착률은 [97]성게에 의한 침식보다 더 높은 경우가 많다.극피층은 연간 약 0.1기가토닌의 이산화탄소를 탄산칼슘으로 분리해 지구 탄소 [98]순환에 중요한 역할을 한다.
극피동물들은 때때로 생태계를 변화시킬 수 있는 큰 개체수 변동을 가지고 있다.예를 들어 1983년 카리브해의 열대성게 디아데마 안티실라룸의 대량 사망은 산호 우위의 암초 체계에서 조류 우위의 [99]암초 체계로의 변화를 야기했다.성게는 암초에 사는 주요 초식동물 중 하나이며 성게와 다시마 그리고 그들이 풀을 뜯는 다른 조류들 사이에 미세한 균형이 있습니다.포식자(오터, 바닷가재, 물고기)의 수가 감소하면 성게의 수가 증가하여 다시마 숲의 과도한 방목을 초래하고 조류로 인한 "성게 불임"[100]을 초래할 수 있습니다.그레이트 배리어 리프에서는 살아 있는 산호조직을 뜯어먹는 가시관 불가사리(Acanthaster planci)의 설명할 수 없는 수가 증가하여 산호 사망률을 크게 증가시키고 산호초의 [101]생물 다양성을 감소시켰다.
인간에 의한 사용
음식과 약으로


2019년에는 129,000톤의 극피엽이 수확되었다.이들 대부분은 해삼(15만8000t)과 성게(7만3000t)[102]였다.이것들은 주로 식용으로 쓰이지만, [103]중국 전통 의학에도 사용된다.해삼은 동남아시아의 일부 국가에서는 별미로 여겨지고 있기 때문에,[104] 과도한 수확의 위기에 처해 있다.인기 있는 종으로는 파인애플 롤러 셀레노타 아나나와 붉은 해삼 홀로트리아 에둘리스 등이 있습니다.이 종들과 다른 종들은 중국과 인도네시아에서는 구어체로 béche de mer 또는 trepang으로 알려져 있다.해삼을 20분간 끓인 후 자연 건조시킨 후 불에서 말리면 훈제탕이 된다.중국에서 그것들은 젤라틴 상태의 수프와 [105]스튜의 기본으로 사용된다.특히 일본과 프랑스에서 성게의 수컷과 암컷 성게가 모두 소비된다.그 맛은 해산물과 [106][107]과일을 섞은 것처럼 부드럽고 녹는 것으로 묘사된다.성게 사육 실험은 과도한 [108]착취를 보상하기 위해 행해졌다.
조사중
성게의 활발한 유충 성장 때문에, 성게는 특히 발달 생물학과 생태독물학의 [109][110][111][112]모범 유기체로 연구에 널리 사용되고 있습니다.태아학 [113]연구에서 이러한 목적으로 강직성 자반과 Arbacia pictulata가 사용된다.난자가 크고 투명해 [109]난자를 수정하는 과정에서 정자세포를 관찰할 수 있다.부서지기 쉬운 별의 팔 재생 잠재력은 인간의 [114]신경 변성 질환을 이해하고 치료하는 것과 관련하여 연구되고 있다.
기타 용도
석회질 시험이나 극피질 껍데기는 석회석을 구할 수 없는 지역의 농부들에 의해 석회 공급원으로 사용되며 일부는 생선 [115]분말 제조에 사용된다.이 동물들 중 4,000톤이 매년 이러한 목적으로 사용된다.이 거래는 종종 조개 양식업자들과 함께 이루어지는데, 불가사리는 그들의 양식된 가축을 먹음으로써 큰 위협이 된다.그들이 회수하는 불가사리의 다른 용도에는 동물 사료 제조, 퇴비화, 예술과 공예 [114]무역을 위한 건조 표본 준비 등이 있다.
「 」를 참조해 주세요.
레퍼런스
- ^ Stöhr, Sabine (2014). "Echinodermata". WoRMS. World Register of Marine Species. Retrieved 23 February 2014.
- ^ "echinoderm". Dictionary.com Unabridged (Online). n.d.
- ^ "Sea Lily". Science Encyclopedia. Retrieved 5 September 2014.
- ^ "echinoderm". Online Etymology Dictionary.
- ^ 도릿, 워커 & 반즈 1991, 페이지 777-779.
- ^ Fox, Richard. "Asterias forbesi". Invertebrate Anatomy OnLine. Lander University. Retrieved 19 May 2012.
- ^ a b Wray, Gregory A. (1999). "Echinodermata: Spiny-skinned animals: sea urchins, starfish, and their allies". Tree of Life. Archived from the original on 23 May 2015. Retrieved 19 October 2012.
- ^ a b Escriva, Hector; Reich, Adrian; Dunn, Casey; Akasaka, Koji; Wessel, Gary (2015). "Phylogenomic Analyses of Echinodermata Support the Sister Groups of Asterozoa and Echinozoa". PLOS ONE. 10 (3): e0119627. Bibcode:2015PLoSO..1019627R. doi:10.1371/journal.pone.0119627. PMC 4368666. PMID 25794146.
- ^ Telford, M. J.; Lowe, C. J.; Cameron, C. B.; Ortega-Martinez, O.; Aronowicz, J.; Oliveri, P.; Copley, R. R. (2014). "Phylogenomic analysis of echinoderm class relationships supports Asterozoa". Proceedings of the Royal Society B: Biological Sciences. 281 (1786): 20140479. doi:10.1098/rspb.2014.0479. PMC 4046411. PMID 24850925.
- ^ Edgecombe, Gregory D.; Giribet, Gonzalo; Dunn, Casey W.; Hejnol, Andreas; Kristensen, Reinhardt M.; Neves, Ricardo C.; Rouse, Greg W.; Worsaae, Katrine; Sørensen, Martin V. (June 2011). "Higher-level metazoan relationships: recent progress and remaining questions". Organisms, Diversity & Evolution. 11 (2): 151–172. doi:10.1007/s13127-011-0044-4. S2CID 32169826.
- ^ "Animal Diversity Web - Echinodermata". University of Michigan Museum of Zoology. Retrieved 26 August 2012.
- ^ a b c d Uthicke, Sven; Schaffelke, Britta; Byrne, Maria (1 January 2009). "A boom–bust phylum? Ecological and evolutionary consequences of density variations in echinoderms". Ecological Monographs. 79: 3–24. doi:10.1890/07-2136.1.
- ^ Arnone, Maria Ina; Byrne, Maria; Martinez, Pedro (2015). "Echinodermata". Evolutionary Developmental Biology of Invertebrates 6. Vienna: Springer Vienna. pp. 1–58. doi:10.1007/978-3-7091-1856-6_1. ISBN 978-3-7091-1855-9.
- ^ Smith, Dave (28 September 2005). "Vendian Animals: Arkarua". Retrieved 14 March 2013.
- ^ Waggoner, Ben (16 January 1995). "Echinodermata: Fossil Record". Introduction to the Echinodermata. Museum of Paleontology: University of California at Berkeley. Retrieved 14 March 2013.
- ^ a b c 도릿, 워커 & 반즈 1991, 페이지 792-793.
- ^ UCMP Berkeley. "Echinodermata: Morphology". University of California Museum of Paleontology. Retrieved 21 March 2011.
- ^ a b Ruppert, Fox & Barnes 2004, 873페이지
- ^ Byrne, Marie; O'Hara, Tim; CSIRO (2017). Australian echinoderms: biology, ecology and evolution. Clayton South, Victoria. pp. 322–324. ISBN 978-1-4863-0763-0. OCLC 960042778.
- ^ Holló, Gábor; Novák, Mihály (2012). "The manoeuvrability hypothesis to explain the maintenance of bilateral symmetry in animal evolution". Biology Direct. 7 (1): 22. doi:10.1186/1745-6150-7-22. PMC 3438024. PMID 22789130.
- ^ Messing, Charles. "Crown and calyx". Charles Messing's Crinoid Pages. Archived from the original on 29 October 2013. Retrieved 29 July 2012.
- ^ Behrens, Peter; Bäuerlein, Edmund (2007). Handbook of Biomineralization: Biomimetic and bioinspired chemistry'. Wiley-VCH. p. 393. ISBN 978-3-527-31805-6.
- ^ Brusca, Moore & Shuster 2016, 979–980페이지.
- ^ Davies, A. Morley (1925). An Introduction to Palaeontology. Thomas Murby. pp. 240–241.
- ^ Perillo, Margherita; Oulhen, Nathalie; Foster, Stephany; Spurrell, Maxwell; Calestani, Cristina; Wessel, Gary (19 August 2020). "Regulation of dynamic pigment cell states at single-cell resolution". eLife. 9. doi:10.7554/elife.60388. PMC 7455242. PMID 32812865.
- ^ Weber, W.; Dambach, M. (April 1974). "Light-sensitivity of isolated pigment cells of the sea urchin Centrostephanus longispinus". Cell and Tissue Research. 148 (3): 437–440. doi:10.1007/BF00224270. PMID 4831958. S2CID 1669387.
- ^ Motokawa, Tatsuo (May 1984). "Connective tissue catch in echinoderms". Biological Reviews. 59 (2): 255–270. doi:10.1111/j.1469-185X.1984.tb00409.x. S2CID 86391676.
- ^ Brusca, Moore & Shuster 2016, 페이지 980.
- ^ a b 도릿, 워커 & 반즈 1991, 페이지 780-791.
- ^ Brusca, Moore & Shuster 2016, 980–982페이지.
- ^ 도릿, 워커 & 반즈 1991, 페이지 784-785.
- ^ Brusca, Moore & Shuster 2016, 페이지 982.
- ^ 도릿, 워커 & 반즈 1991, 페이지 790-793.
- ^ Jangoux, Michel (1982). "11. Digestive Systems". In Jangoux, Michel; Lawrence, John M. (eds.). Echinoderm Nutrition. Rotterdam: A. A. Balkema. p. 244. ISBN 978-90-6191-080-0.
- ^ Rigby, P. Robin; Iken, Katrin; Shirayama, Yoshihisa (2007). Sampling Biodiversity in Coastal Communities: NaGISA Protocols for Seagrass and Macroalgal Habitats. NUS Press. p. 44. ISBN 978-9971693688.
- ^ Ruppert, Fox & Barnes 2004, 페이지 885.
- ^ Ruppert, Fox & Barnes 2004, 페이지 891.
- ^ Ruppert, Fox & Barnes 2004, 페이지 902~904.
- ^ Ruppert, Fox & Barnes 2004, 페이지 912.
- ^ Ruppert, Fox & Barnes 2004, 페이지 920.
- ^ Moore, Janet; Overhill, Raith (2006). An Introduction to the Invertebrates (2nd ed.). Cambridge University Press. p. 245. ISBN 978-0521674065.
- ^ Hickman, C., Jr.; Roberts, L.; Larson, A. (2003). Animal Diversity. Granite Hill Publishers. p. 271. ISBN 978-0071195492. OCLC 1148032077.
- ^ "Macrobenthos of the North Sea - Echinodermata > Introduction". etibioinformatics.nl.
- ^ Nielsen, Claus (2012). Animal Evolution: Interrelationships of the Living Phyla (3rd ed.). Oxford University Press. p. 78. ISBN 978-0199606023.
- ^ a b Ramirez-Gomez, Fransisco (27 September 2010). "Echinoderm Immunity". Invertebrate Survival Journal.
- ^ Smith, Courtney (January 2010). "Echinoderm Immunity". Advances in Experimental Medicine and Biology. 708: 260–301. doi:10.1007/978-1-4419-8059-5_14. ISBN 978-1-4419-8058-8. PMID 21528703.
- ^ Smith, L. Courtney; Ghosh, Julie; Buckley, Katherine M.; et al. (2010). "Echinoderm Immunity". Advances in Experimental Medicine and Biology. Vol. 708. Boston, Massachusetts: Springer. pp. 260–301. doi:10.1007/978-1-4419-8059-5_14. ISBN 978-1-4419-8058-8. PMID 21528703.
- ^ a b Ruppert, Fox & Barnes 2004, 872–929페이지.
- ^ James, Philip; Siikavuopio, Sten; Johansson, Gunhild Seljehaug (2018). "A Guide to the Sea Urchin Reproductive Cycle and Staging Sea Urchin Gonad Samples" (PDF). Nofima. Retrieved 21 June 2022.
The GI [% of body weight made up by the gonad] of urchins in the wild can vary hugely and can be less than 1% or as high as 20%, whilst for cultured sea urchins GI values can be as high as 35%
- ^ Edmondson, C.H. (1935). "Autotomy and regeneration of Hawaiian starfishes" (PDF). Bishop Museum Occasional Papers. 11 (8): 3–20.
- ^ a b McAlary, Florence A. (1993). Population Structure and Reproduction of the Fissiparous Seastar, Linckia columbiae Gray, on Santa Catalina Island, California. 3rd California Islands Symposium. National Park Service. Retrieved 15 April 2012.
- ^ a b c 위의Hotchkiss, Frederick H. C. (1 June 2000). "On the Number of Rays in Starfish". American Zoologist. 40 (3): 340–354. doi:10.1093/icb/40.3.340. 검토에서 마지막 단락을 참조하십시오.
- ^ a b c Fisher, W. K. (1 March 1925). "Asexual Reproduction in the Starfish, Sclerasterias" (PDF). Biological Bulletin. 48 (3): 171–175. doi:10.2307/1536659. JSTOR 1536659. Retrieved 15 July 2011.
- ^ Dobson, W. E.; S. E. Stancyk; L. A. Clements; R. M. Showman (1 February 1991). "Nutrient Translocation during Early Disc Regeneration in the Brittlestar Microphiopholis gracillima (Stimpson) (Echinodermata: Ophiuroidea)". Biol Bull. 180 (1): 167–184. doi:10.2307/1542439. JSTOR 1542439. PMID 29303627. Retrieved 14 July 2011.
- ^ Carnevali, Candia (2006). "Regeneration in Echinoderms: repair, regrowth, cloning". International Scientific Journal. 3: 64–76. ISSN 1824-307X.
- ^ Mashanov, Vladimir S.; Igor Yu. Dolmatov; Thomas Heinzeller (1 December 2005). "Transdifferentiation in Holothurian Gut Regeneration". The Biological Bulletin. 209 (3): 184–193. doi:10.2307/3593108. JSTOR 3593108. PMID 16382166. S2CID 27847466.
- ^ Young, Craig M.; Eckelbarger, Kevin J. (1994). Reproduction, Larval Biology, and Recruitment of the Deep-Sea Benthos. Columbia University Press. pp. 179–194. ISBN 0231080042.
- ^ Ruppert, Fox & Barnes 2004, 페이지 887–888.
- ^ Ruppert, Fox & Barnes 2004, 페이지 895.
- ^ Ruppert, Fox & Barnes 2004, 페이지 888
- ^ Ruppert, Fox & Barnes 2004, 페이지 908.
- ^ Ruppert, Fox & Barnes 2004, 페이지 916.
- ^ Ruppert, Fox & Barnes 2004, 페이지 922.
- ^ Yamaguchi, M.; J. S. Lucas (1984). "Natural parthenogenesis, larval and juvenile development, and geographical distribution of the coral reef asteroid Ophidiaster granifer". Marine Biology. 83 (1): 33–42. doi:10.1007/BF00393083. S2CID 84475593.
- ^ McGovern, Tamara M. (5 April 2002). "Patterns of sexual and asexual reproduction in the brittle star Ophiactis savignyi in the Florida Keys" (PDF). Marine Ecology Progress Series. 230: 119–126. Bibcode:2002MEPS..230..119M. doi:10.3354/meps230119.
- ^ Monks, Sarah P. (1 April 1904). "Variability and Autotomy of Phataria". Proceedings of the Academy of Natural Sciences of Philadelphia. 56 (2): 596–600. JSTOR 4063000.
- ^ Kille, Frank R. (1942). "Regeneration of the Reproductive System Following Binary Fission in the Sea-Cucumber, Holothuria parvula (Selenka)" (PDF). Biological Bulletin. 83 (1): 55–66. doi:10.2307/1538013. JSTOR 1538013.
- ^ a b Eaves, Alexandra A.; Palmer, A. Richard (11 September 2003). "Reproduction: Widespread cloning in echinoderm larvae". Nature. 425 (6954): 146. Bibcode:2003Natur.425..146E. doi:10.1038/425146a. hdl:10402/era.17195. PMID 12968170. S2CID 4430104.
- ^ Jaeckle, William B. (1 February 1994). "Multiple Modes of Asexual Reproduction by Tropical and Subtropical Sea Star Larvae: An Unusual Adaptation for Genet Dispersal and Survival" (PDF). Biological Bulletin. 186 (1): 62–71. doi:10.2307/1542036. JSTOR 1542036. PMID 29283296. Retrieved 13 July 2011.
- ^ a b c Vaughn, Dawn (October 2009). "Predator-Induced Larval Cloning in the Sand Dollar Dendraster excentricus: Might Mothers Matter?". Biological Bulletin. 217 (2): 103–114. doi:10.1086/BBLv217n2p103. PMID 19875816. S2CID 26030855.
- ^ McDonald, Kathryn A.; Dawn Vaughn (1 August 2010). "Abrupt Change in Food Environment Induces Cloning in Plutei of Dendraster excentricus". Biological Bulletin. 219 (1): 38–49. doi:10.1086/BBLv219n1p38. PMID 20813988. S2CID 24422314. Retrieved 16 July 2011.
- ^ a b Vaughn, Dawn; Richard R. Strathmann (14 March 2008). "Predators induce cloning in echinoderm larvae". Science. 319 (5869): 1503. Bibcode:2008Sci...319.1503V. doi:10.1126/science.1151995. JSTOR 40284699. PMID 18339931. S2CID 206509992. Retrieved 16 July 2011.
- ^ Vaughn, Dawn (March 2010). "Why run and hide when you can divide? Evidence for larval cloning and reduced larval size as an adaptive inducible defense". Marine Biology. 157 (6): 1301–1312. doi:10.1007/s00227-010-1410-z. S2CID 84336247.
- ^ a b 도릿, 워커 & 반즈 1991 페이지 778
- ^ Brusca, Moore & Shuster 2016, 997–998페이지.
- ^ van Egmond, Wim (1 July 2000). "Gallery of Echinoderm Larvae". Microscopy UK. Retrieved 2 February 2013.
- ^ a b Brusca, Moore & Shuster 2016, 페이지 968.
- ^ Xiaofeng, Wang; Hagdorn, Hans; Chuanshang, Wang (September 2006). "Pseudoplanktonic lifestyle of the Triassic crinoid Traumatocrinus from Southwest China". Lethaia. 39 (3): 187–193. doi:10.1080/00241160600715321.
- ^ Smith, J. E. (1937). "The structure and function of the tube feet in certain echinoderms" (PDF). Journal of the Marine Biological Association of the United Kingdom. 22 (1): 345–357. doi:10.1017/S0025315400012042. Archived from the original (PDF) on 15 November 2013.
- ^ Astley, H. C. (2012). "Getting around when you're round: Quantitative analysis of the locomotion of the blunt-spined brittle star, Ophiocoma echinata". Journal of Experimental Biology. 215 (11): 1923–1929. doi:10.1242/jeb.068460. PMID 22573771.
- ^ Brusca, Moore & Shuster 2016, 982–983페이지.
- ^ "Sand star - Luidia foliolata". Sea Stars of the Pacific Northwest. Archived from the original on 9 September 2012. Retrieved 26 September 2012.
- ^ Ruppert, Fox & Barnes 2004, 899–900페이지.
- ^ Ruppert, Fox & Barnes 2004, 페이지 911-912.
- ^ Messing, Charles. "The crinoid feeding mechanism". Charles Messing's Crinoid Pages. Archived from the original on 14 January 2013. Retrieved 26 July 2012.
- ^ a b Barnes, Robert D. (1982). Invertebrate Zoology. Holt-Saunders International. pp. 997–1007. ISBN 0-03-056747-5.
- ^ a b Ruppert, Fox & Barnes 2004, 페이지 893.
- ^ a b Carefoot, Tom. "Learn about sea urchins: feeding, nutrition & growth". A Snail's Odyssey. Archived from the original on 22 March 2013. Retrieved 23 February 2013.
- ^ a b Ruppert, Fox & Barnes 2004, 페이지 914.
- ^ a b Ruppert, Fox & Barnes 2004, 페이지 884-885.
- ^ Carefoot, Tom. "Learn about feather stars: feeding & growth". A Snail's Odyssey. Archived from the original on 12 January 2013. Retrieved 23 February 2013.
- ^ Carefoot, Tom. "Learn about sand dollars: feeding & growth". A Snail's Odyssey. Archived from the original on 19 October 2012. Retrieved 23 February 2013.
- ^ Miller, John E. "Echinoderm: role in nature". Encyclopædia Britannica. Retrieved 23 June 2022.
- ^ 도릿, 워커 & 반즈 1991 페이지 779
- ^ 도릿, 워커 & 반즈 1991, 페이지 789-790.
- ^ Mladenov, Philip V.; Igdoura, Suleiman; Asotra, Satish; Burke, Robert D. (1 April 1989). "Purification and partial characterisation of an autotomy-promoting factor from the sea star Pycnopodia Helianthoides". The Biological Bulletin. 176 (2): 169–175. doi:10.2307/1541585. JSTOR 1541585.
- ^ Herrera-Escalante, T.; López-Pérez, R. A.; Leyte-Morales, G. E. (2005). "Bioerosion caused by the sea urchin Diadema mexicanum (Echinodermata: Echinoidea) at Bahías de Huatulco, Western Mexico". Revista de Biología Tropical. 53 (3): 263–273. PMID 17469255.
- ^ Lebrato, Mario; Iglesias-Rodríguez, Debora; Feely, Richard A.; et al. (2010). "Global contribution of echinoderms to the marine carbon cycle: CaCO3 budget and benthic compartments". Ecological Monographs. 80 (3): 441–467. doi:10.1890/09-0553.1.
- ^ Osborne, Patrick L. (2000). Tropical Ecosystem and Ecological Concepts. Cambridge University Press. p. 464. ISBN 0-521-64523-9.
- ^ Lawrence, J. M. (1975). "On the relationships between marine plants and sea urchins" (PDF). Oceanographic Marine Biological Annual Review. 13: 213–286. Archived from the original (PDF) on 5 February 2011.
- ^ Birkeland, Charles; Lucas, John S. (1990). "Effects of A. planci on Coral-Reef Communities". Acanthaster planci: Major Management Problem of Coral Reefs. Florida: CRC Press. pp. 148–159. ISBN 0849365996.
- ^ "B-76 Sea-urchins and other echinoderms Capture production by species, fishing areas and countries or areas" (PDF). FAO. pp. 463–465. Retrieved 23 June 2022.
- ^ Pangestuti, Ratih; Arifin, Zainal (2018). "Medicinal and health benefit effects of functional sea cucumbers". Journal of Traditional and Complementary Medicine. 8 (3): 341–351. doi:10.1016/j.jtcme.2017.06.007. PMC 6035309. PMID 29992105.
- ^ "Sea Cucumbers Threatened by Asian Trade". The New York Times. April 2009. Retrieved 1 April 2009.
- ^ Wikisource: 1911 브리태니커 백과/베슈 드 메르
- ^ Lawrence, John M. (2001). "The edible sea urchins". In John M. Lawrence (ed.). Edible Sea Urchins: Biology and Ecology. Developments in Aquaculture and Fisheries Science. Vol. 37. pp. 1–4. doi:10.1016/S0167-9309(01)80002-8. ISBN 978-0444503909.
- ^ 데이비드슨, 앨런 (2014) 옥스포드 푸드 컴패니언옥스퍼드 대학 출판부 제3판 730쪽
- ^ Sartori D., Scuderi A.; Sansone G.; Gaion A. (February 2015). "Echinoculture: the rearing of Paracentrotus lividus in a recirculating aquaculture system—experiments of artificial diets for the maintenance of sexual maturation". Aquaculture International. 23: 111–125. doi:10.1007/s10499-014-9802-6. S2CID 18856183.
- ^ a b "Insight from the Sea Urchin". Microscope Imaging Station. Exploratorium. Archived from the original on 5 February 2018. Retrieved 23 June 2022.
- ^ Sartori, D.; Gaion, A. (2015). "Toxicity of polyunsaturated aldehydes of diatoms to Indo-Pacific bioindicator organism Echinometra mathaei". Drug and Chemical Toxicology. 39 (2): 124–8. doi:10.3109/01480545.2015.1041602. PMID 25945412. S2CID 207437380.
- ^ Gaion, A.; Scuderi, A.; Pellegrini, D.; Sartori, D. (2013). "Arsenic Exposure Affects Embryo Development of Sea Urchin, Paracentrotus lividus (Lamarck, 1816)". Bulletin of Environmental Contamination and Toxicology. 39 (2): 124–8. doi:10.3109/01480545.2015.1041602. PMID 25945412. S2CID 207437380.
- ^ Hart, M. W. (January–February 2002). "Life history evolution and comparative developmental biology of echinoderms". Evolution and Development. 4 (1): 62–71. doi:10.1046/j.1525-142x.2002.01052.x. PMID 11868659. S2CID 39175905.
- ^ Longo, F. J.; Anderson, E. (June 1969). "Sperm differentiation in the sea urchins Arbacia punctulata and Strongylocentrotus purpuratus". Journal of Ultrastructure Research. 27 (5): 486–509. doi:10.1016/S0022-5320(69)80046-8. PMID 5816822.
- ^ a b Barkhouse, C.; Niles, M.; Davidson, L. A. (2007). "A literature review of sea star control methods for bottom and off bottom shellfish cultures" (PDF). Canadian Industry Report of Fisheries and Aquatic Sciences. 279 (7): 14–15. Archived from the original (PDF) on 22 May 2013.
- ^ "Sea stars". Wild Singapore. Retrieved 4 February 2013.
인용문
- Brusca, Richard C.; Moore, Wendy; Shuster, Stephen M. (2016). Invertebrates (3rd ed.). Sunderland, Massachusetts. ISBN 978-1-60535-375-3. OCLC 928750550.
- Dorit, R. L.; Walker, W. F.; Barnes, R. D. (1991). Zoology, International edition. Saunders College Publishing. ISBN 978-0-03-030504-7.
- Ruppert, Edward E.; Fox, Richard, S.; Barnes, Robert D. (2004). Invertebrate Zoology (7th ed.). Cengage Learning. ISBN 81-315-0104-3.
외부 링크


- 과학 백과사전의 바다 릴리
- 자연사박물관의 에키노이드 디렉토리
- 생명의 나무 웹 프로젝트의 에키노더마타
- 북해의 Ekinoderms 2008년 4월 13일 웨이백 머신에 보관
- 유충 에키노더마타 팩트 시트